离开水面,不等于离开水
许多鱼一旦离水,最先面对的并不是“有没有腿”,而是鳃。鳃在水中依靠水流完成交换;弹涂鱼离水后,鳃不再能被水有效冲洗。研究综述因此把气体交换、氮废物排出、离子和水分调节都列为两栖生活需要协调的部分。弹涂鱼并非把鳃改成了哺乳动物的肺,而是在水和空气之间反复切换,尽量维持适合活动的湿润条件。
那么氧从哪里进入?答案也不能只用一句“从皮肤呼吸”带过。对巨弹涂鱼 Periophthalmodon schlosseri 的生理研究显示,它会用口腔吸入并保留大口空气;口腔上皮血管丰富,空气到血液的扩散距离很小,因此口腔内壁是这个物种在空气中进行气体交换的明确部位。该研究同时发现,它的皮肤含较多胆固醇和饱和脂肪酸,气体渗透性较低,这有助于限制氨进入。也就是说,湿润皮肤很重要,却不等于皮肤一定是所有弹涂鱼在陆上的主要吸氧器官。口腔、鳃、皮肤各自的贡献会随物种和环境而变;在没有对应实验之前,把比例说得很精确并不可靠。
研究弹涂鱼行为和内分泌调节的综述提到,部分种在陆上会把水保留在口腔和鳃盖腔内。这一点能解释泥滩上常见的“突然回水”:它不一定是在逃跑,也可能是在补充口腔和鳃盖腔里的水,重新湿润体表,或恢复适合取食和活动的状态。鱼在湿泥上侧身翻滚,也可以放在这一脉络里理解。湿润泥面能帮助保持背部皮肤湿润,但不能因此把每一次翻滚写成固定的“泥浴呼吸仪式”。不同种、不同温度、泥面含水量和个体状态,都可能改变它停留在外面的时间。
这里有一个容易忽略的细节:空气中的氧要进入血液,仍然需要合适的交换表面和足够短的扩散路径。巨弹涂鱼的口腔上皮之所以值得单独提出,正是因为研究者在这个特定物种上观察到丰富的血管和很小的空气到血液距离。这个结构也说明了为什么“张嘴”并非一定是简单的吞咽或威胁姿势,口腔本身可以是两栖生活的一部分。反过来,不能因为鱼的身体湿润,就把所有表皮都想成同样高效的呼吸器官。水分保护、盐分调节、限制有害物进入和气体交换之间有联系,却不是一件事。
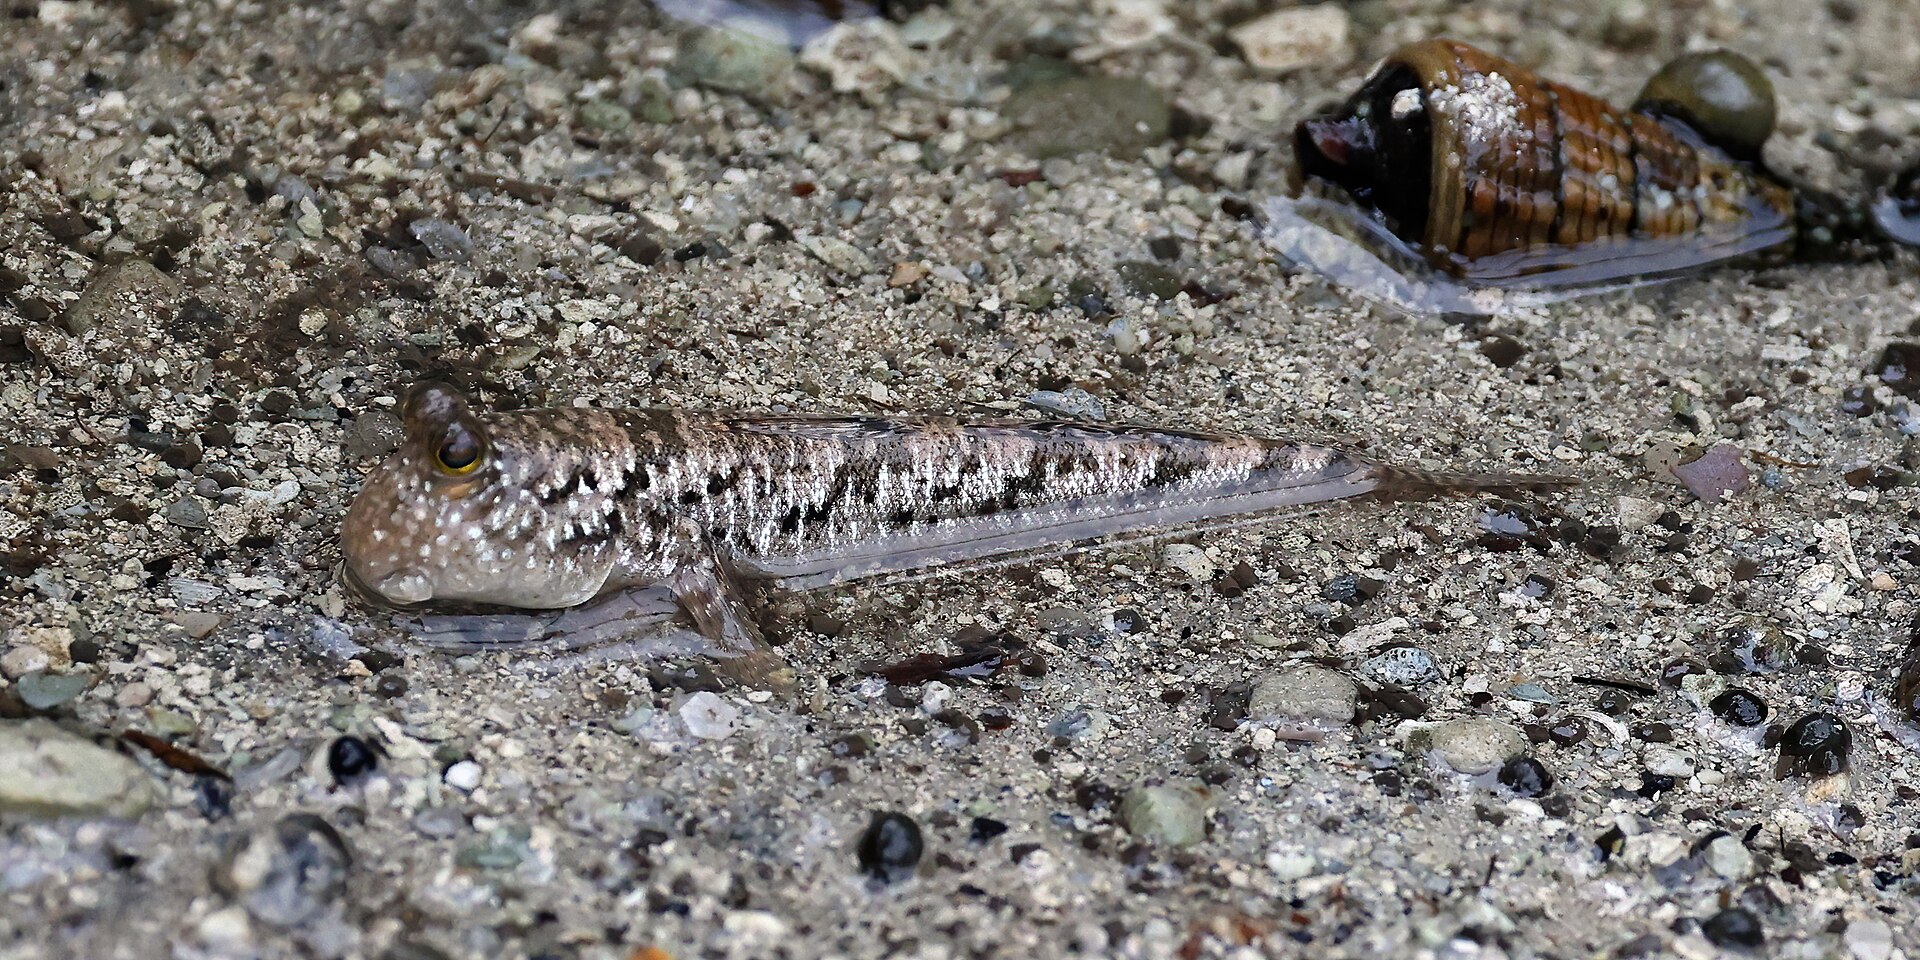
对现场观察来说,先把一条鱼的往返看完整会比只截取一次跳跃更有收获。它从浅水冒头,停到泥面上,胸鳍撑开,移动一段距离,又回到沟里,这一连串动作能让人看见它并未和水切断联系。记录它何时停顿、转向、回水,以及水沟与洞口的位置,通常比给动作贴上“勇敢”或“害怕”的标签更接近可观察的事实。
这也让低潮的泥滩变成一个有边界的活动场。弹涂鱼可以在露出的底质上觅食、展示或避开水中的捕食风险,却不能把水当成已经无关的背景。综述汇集的研究曾记录某些弹涂鱼将相当大比例的时间用在水外,范围可达 40% 到 90%;这只是不同研究对象和条件下的范围,不能拿来推算泰国某个红树林一天会有多少条鱼、哪一潮最热闹。对观察者而言,最可靠的线索反而很朴素:看它是否不断在水沟、浅水坑、湿泥和洞口之间往返,而不要只等一个“跳得最远”的镜头。
胸鳍怎样把鱼身撑离泥面
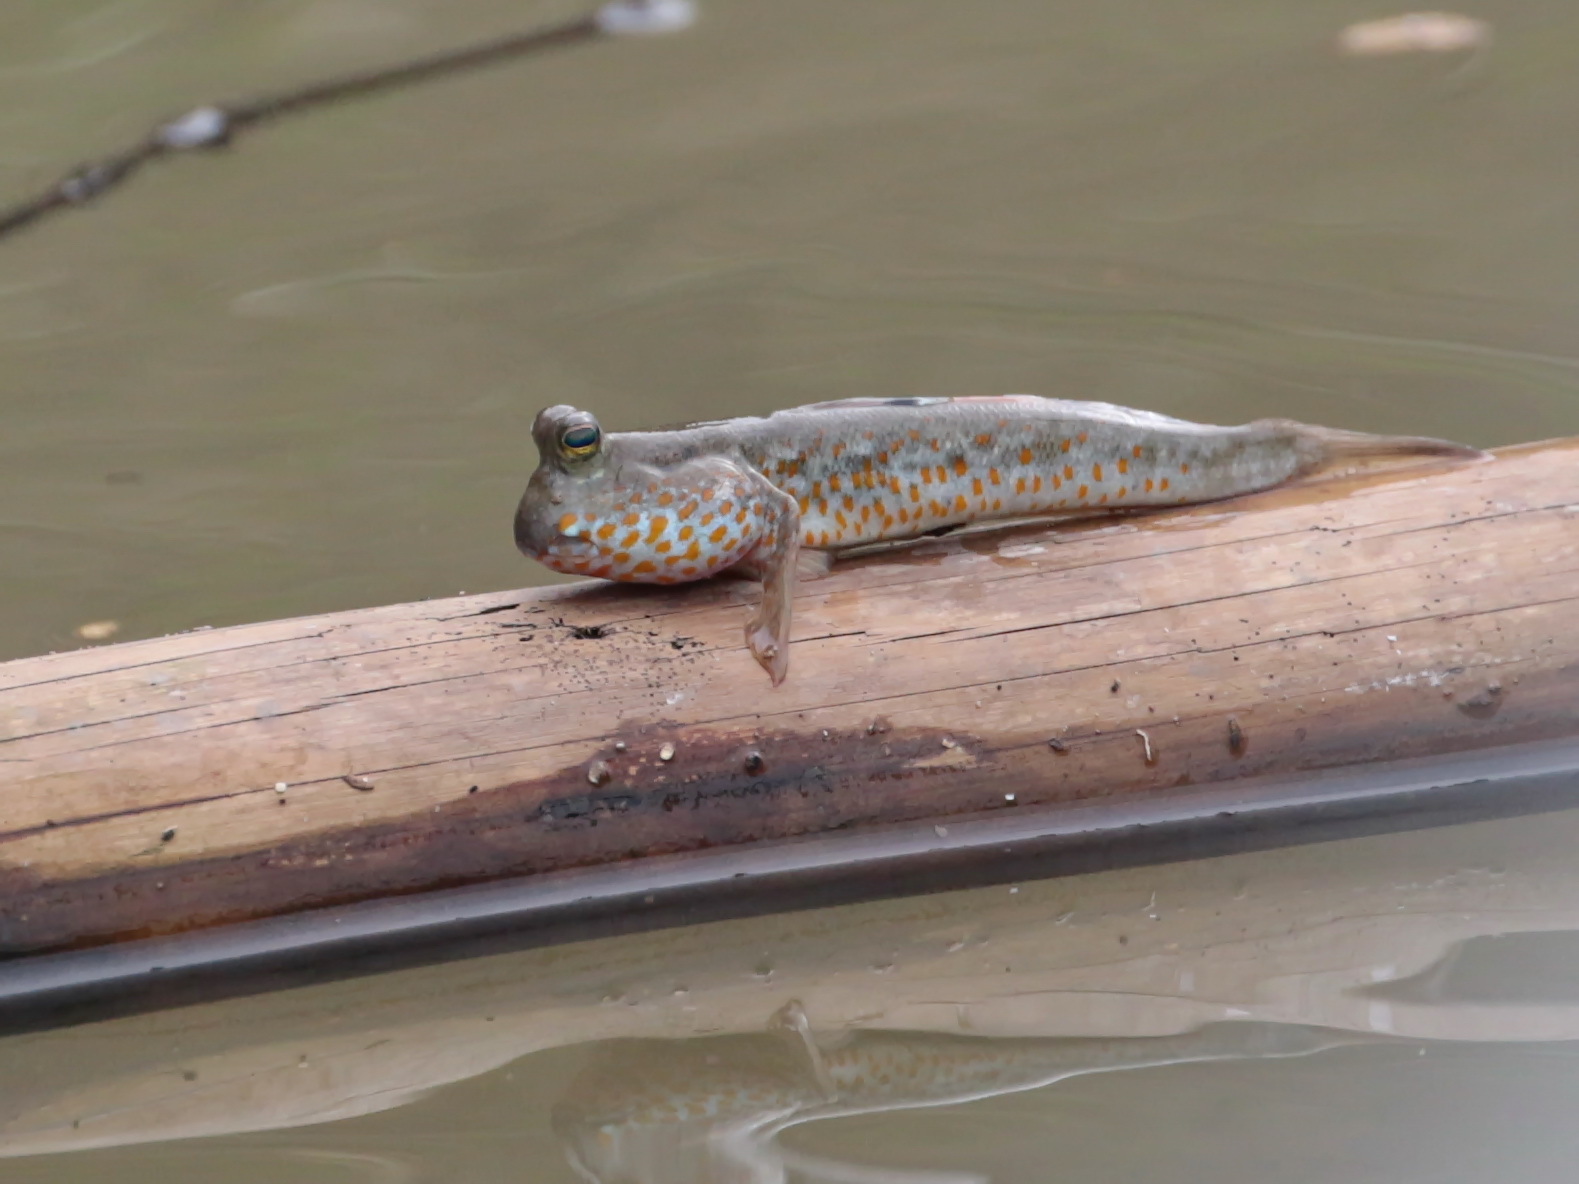
弹涂鱼在泥上移动时,最显眼的是两侧胸鳍。它们不是长出了真正的腿,也不是把尾巴完全闲置,而是在原有鱼鳍的骨骼和肌肉基础上,形成了更适合承重和控制方向的结构。胸鳍能在泥面提供支撑,身体和尾部也参与陆上移动;具体的发力次序要结合物种、底质和动作判断。泥越软,支点越容易下陷,动作就越需要不断调整。
日本研究者对 Periophthalmus modestus 的胸鳍发育和成体骨骼进行观察,发现它的近端辐骨比一般虾虎鱼更伸长,也更从体壁向外突出。连接部位形成可动的关节,较大的肩带骨板提供胸鳍肌肉附着的位置。论文谨慎地将这些特征与陆上运动的控制、灵活性和支撑体重联系起来。把这段研究换成日常语言,就是:胸鳍并非只有一片柔软的鳍膜,鳍根附近的骨骼、关节和肌肉共同决定了它能否在不平的泥面上把身体抬起、把力送到地面,再把身体带向下一处湿地。
不过,这份解剖研究的对象是 P. modestus,不能直接替每一种泰国弹涂鱼画出同样的骨骼比例。不同弹涂鱼的陆栖程度并不相同:有些更常在露泥处活动,有些更依赖水沟或浅水;同样是胸鳍支撑,也会因为体形、底质和行为目的而呈现不同动作。旅行照片中常把“撑起身体”的姿势称为走路,这个比喻便于理解,但若要说明机制,保留“胸鳍支撑的陆上移动”会更准确。
软泥也让这种移动和陆地动物踩在硬地上不同。泥面会被压出浅坑,表层水膜会改变摩擦,身体稍微偏重就可能陷得更深。胸鳍提供支撑,并不意味着鱼每次都要走出相同的步态;有时更像短促地撑开和滑移,有时是身体与尾部一起发力的跃动。拍摄或记录时,可以保留停顿、转身和回水这些连续片段,而不是只把动作剪成单一的“走路镜头”。这样更能显示它是在复杂底质上移动。
泥滩上的觅食、展示与冲突
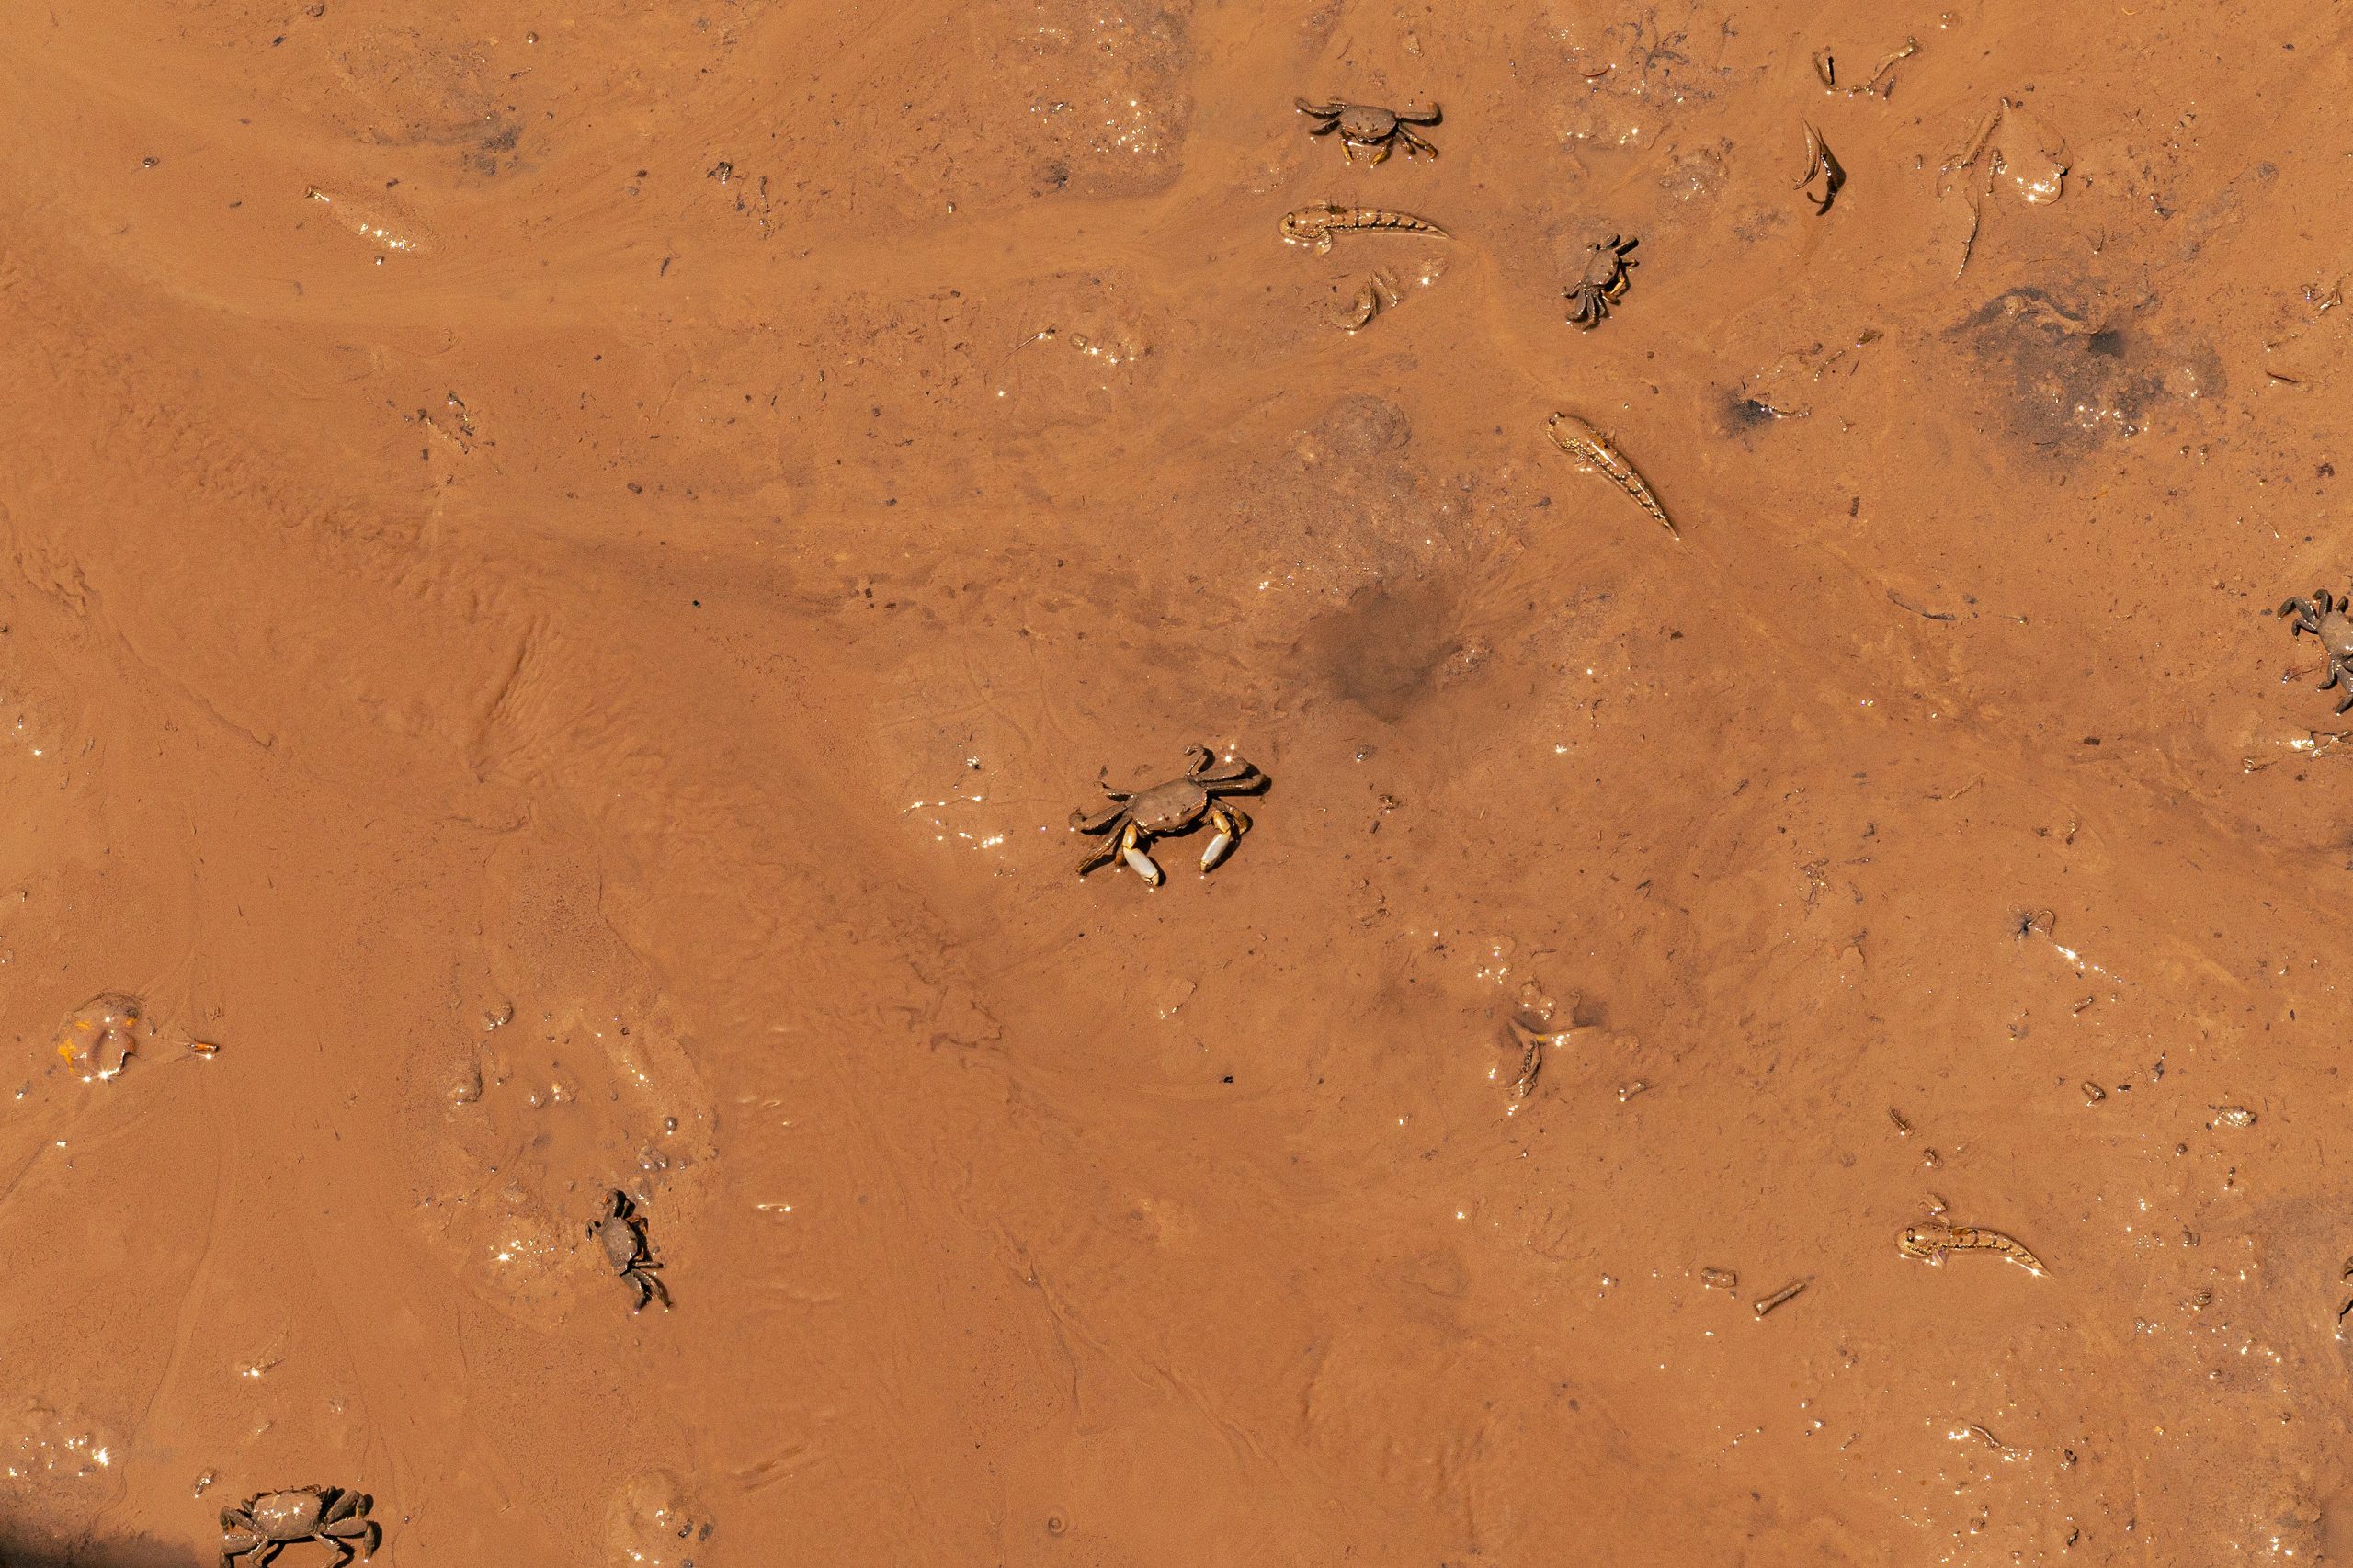
退潮不是单纯的空场。水退到浅沟后,泥面留下微小生物、沉积物表层和可以被利用的食物,暴露的空间也使同类之间更容易看见彼此。研究综述把觅食和避开捕食者列为弹涂鱼离水的两类情境;而在日本泥滩拍摄的 BBC Earth Life 片段中,可以看到个体在露泥处找食物、求偶跳跃、领地冲突、在湿泥上翻滚,以及小型个体挖掘或维护洞穴。那段画面很适合帮助读者把静态的泥滩想象成连续发生动作的地方,但它展示的是日本,而不是泰国现场记录。
从行为上看,觅食、展示和冲突也不必被硬分成三套完全独立的程序。一条鱼为了找食物离开水沟,可能顺便进入另一条鱼的活动范围;一段求偶展示可能因对方或竞争者靠近而中断;回水和保持体表湿润也是这段陆上生活的一部分,因此记录互动时,还应留意个体何时返回浅水或湿泥。观察时若只盯着一次跳跃,很容易把行为写成“为了求偶而跳”;若能同时看它之前从哪里来、之后回到哪里、周围是否有洞口和浅水,解释会稳得多。
因此,泥滩上的热闹不等于可以近距离追逐。弹涂鱼的活动尺度本来就很小,人走近一步可能同时遮挡光线、踩塌水沟边缘、压坏洞口,或让鱼提前退回水里。想拍摄时,站在结实的步道或已硬化的岸边,使用长焦距,等待鱼自行进入画面,比跨进柔软泥面更能看见原本的行为。红树林根系、泥滩边缘与步道的关系,可延伸阅读红树林根与泥滩导览。
洞穴不是一个统一的地下房间
泥滩上的洞口常让人以为地下只有一根垂直管道。弹涂鱼的洞穴远比这个印象复杂,但“复杂”也不能被写成每一种鱼都有同样的多室住所。洞形、开口数、深度和是否有卵室,都随着物种、泥的颗粒和黏性、植物根系、潮位以及使用目的而变化。洞穴可以提供躲避空间,也可能与繁殖和卵的发育有关;观察到一个洞口并不能仅凭外观判定里面一定有卵或亲鱼。
一项在越南湄公河三角洲进行的野外研究,对 Periophthalmus chrysospilos 连续观察十二个月,并用树脂翻制洞道。研究者看到雄鱼在退潮时用嘴掘泥;样本中有 J、Y、U 三类洞形,地面开口为一到两个,部分洞道有膨大的卵室。该研究的平均长度和深度约为二十多厘米和十几厘米,数值本身很吸引人,但它们属于当地的这个物种、这些地点和当时的底质,不能移到泰国海湾,更不能当作所有弹涂鱼的“标准洞深”。
同一篇研究也梳理了更广的比较资料:冲绳的 P. argentilineatus 与 P. modestus 被报道挖 Y 形洞;另一些种的洞可能为 J、U、W 形,洞口数量也不同。底质纹理、根系和植被会影响洞道。对泰国泥滩来说,这个比较比一串统一尺寸更有用:看到洞口周围的泥堆、支沟和植物根,不妨把它们当作需要继续观察的线索,而不是马上替鱼补出一个确定的地下结构。
把“会走的鱼”看成潮间带的居民
弹涂鱼最迷人的地方,不是它好像突破了鱼和陆地之间的界线,而是它一直没有真正摆脱水。胸鳍让它能在泥面支撑和移动;巨弹涂鱼的口腔内壁可进行空气中的气体交换,其他部位的贡献则要按物种判断;口腔与鳃盖腔中的水、湿润体表和回水行为帮助它应付离水的代价。洞穴和浅沟又把潮位、避敌和繁殖连在一起。每一个动作都同时受身体结构和潮间带环境约束。
下次在泰国的河口、红树林边缘或潮间带泥滩看到它们时,可以先问几个简单的问题:鱼从哪一段水沟出来?泥面仍有多湿?它是否在胸鳍支撑后很快回水?洞口周围有没有被反复搬动的泥?这些问题比“它是不是在走路”更接近真实的生物学。也应保留一点克制:不要掘洞、翻泥或用手把鱼赶出来;不确定物种时,把它称为弹涂鱼即可。泥滩看似安静,却是由潮水、泥、水沟、根系和一条条小鱼共同维持的活动空间。
如果要停下来多看一会儿,潮水正在涨还是正在退往往比一条鱼停留几秒更有解释力。退潮让泥面和洞口露出,涨潮又重置了水沟与可活动的边界。人能在一次短访中看到的只是这个循环的一小段,不宜由几分钟的影像推断整天的作息。把时间、潮位和拍摄位置记下来,会让下一次的比较比“见到很多”或“今天没见到”更有意义。