先把名字和辨认线索放在一起
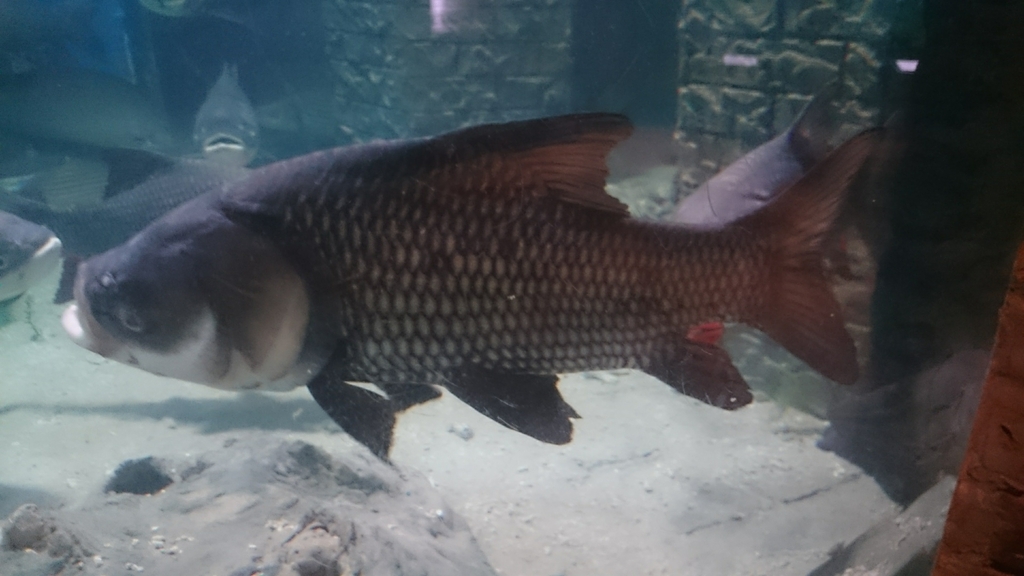
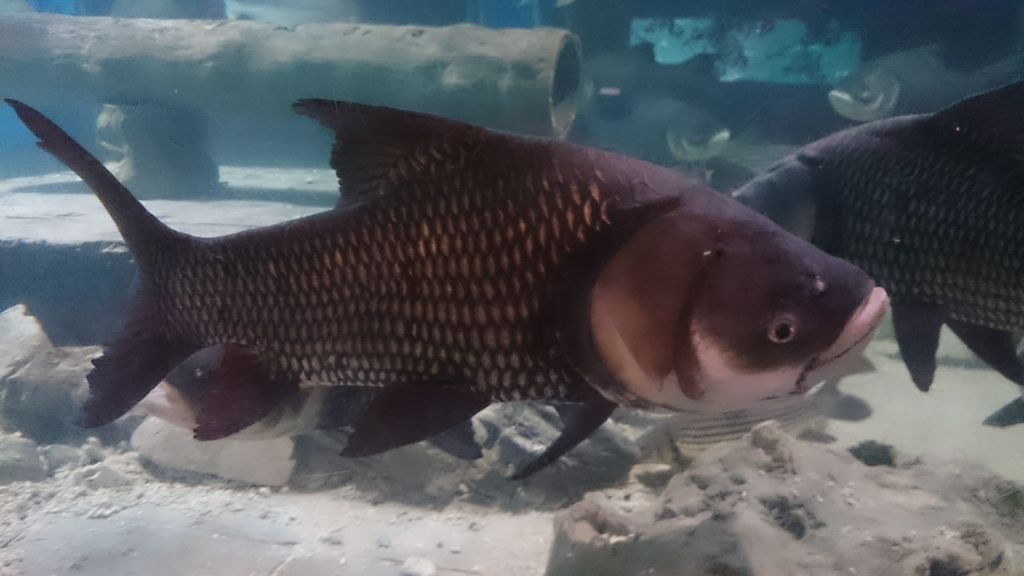
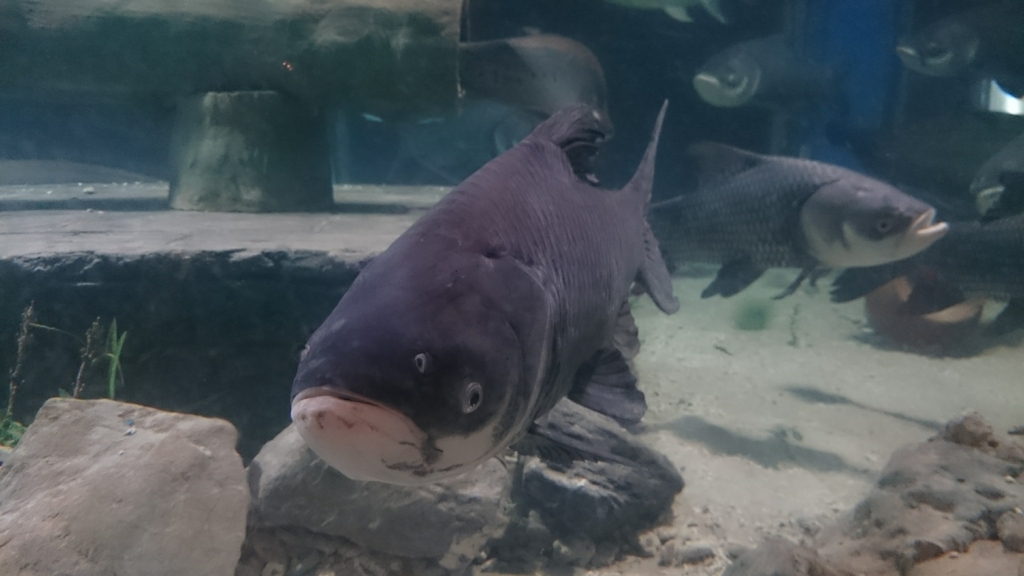
文中的三张照片来自同一位作者在同一天拍摄的泰国圈养展示缸;它们从不同角度呈现同一观察场景,适合用来查看头部和身体比例,不作为独立的野外个体记录。GBIF 的分类匹配将 Catlocarpio siamensis Boulenger, 1898 列为有效接受名,归在鲤科、Catlocarpio 属。属名只有这一个物种,并不意味着在河边看见一尾大鱼就能立刻认定它;野外辨认仍需要完整的身体特征、清晰的记录地点和时间。GBIF 的泰国筛选记录中可见北柳、曼谷和北榄的人类观察线索,它们说明这种鱼有被记录到泰国的例子,却不能替代完整的流域调查,也不能从几条观察记录推算哪里还有多少鱼。
FishBase 的物种摘要给出一组很适合逐项看的外部特征:头长约为标准体长的四成;口边没有须;背鳍没有硬棘;第一鳃弓上有九十至一百一十枚长鳃耙。标准体长通常量到尾柄基部,因此“头长约为标准体长的四成”描述的是头和躯干的比例,并非从吻端量到尾鳍尖端的总长。照片角度、鱼体转身和水的折射都会改变比例印象,真正有用的是把这些线索合起来看,而不是只靠“头看起来大”下结论。
无须和无背鳍硬棘也是很具体的排除点。很多人把鲤科鱼想成口边必有须,或把背鳍前缘的坚硬结构当成所有大鱼共有的特征;对暹罗巨鲤,这两项都不成立。鳃耙则藏在鳃弓内侧,通常不会像头部轮廓一样在远景里直接看清。它的数量和“长”来自形态摘要,提醒我们这并不是只靠一张展示缸侧面照就能完成的鉴定工作。照片可以帮助人建立轮廓感,解剖特征和可靠记录才让名称有可追溯的依据。
“三米”是一条需要连同注脚读的说法
关于暹罗巨鲤,最常被摘取的数字是三米。2018 年一篇泰国样本的细胞遗传研究在物种介绍中称它可达三米;FishBase 同时将三百厘米的最大长度标成“需要确认”。这两层信息应当一起保留:三米是一则流传广泛、被研究论文引用的物种尺度描述,但并不是一条已经由该研究逐尾测量并确立的上限。把它写成“每条都能长到三米”,或当成某一尾展示缸个体的实测长度,都会越过现有依据。
成鱼、幼鱼与一条会涨会落的河
FishBase 列出的分布包括泰国西部的湄功河(Mae Klong)、湄公河(Mekong)和昭披耶河流域。湄功河与湄公河中文名接近,却是不同河流。这里说的是物种资料列出的流域范围;下文的幼鱼和季节迁移细节,则主要来自委员会对湄公河及其支流的历史调查。
暹罗巨鲤的生活环境不能只用“住在大河里”一笔带过。Mekong River Commission 归档的迁移资料记录,成鱼报告于深水潭,幼鱼则见于泛滥平原和小支流。这里的“成鱼在深水潭、幼鱼在泛滥平原”是历史资料的归纳,不是给每条河、每一天安排固定座位的规律;它仍然提供了一个重要视角:同一物种在不同生长阶段,可能依赖水位上涨后才连起来的不同水域。
这份资料还把迁移方向写得很具体:洪水季末水位开始回落时,当年幼鱼和亚成体从淹水地区回到主河道和支流;干季则生活在与主河道相关的深水潭。这样的叙述把“泛滥平原”和“深水潭”连成一段季节过程,而非两处彼此隔绝的栖地标签。它也让读者在看一条河时多问一步:涨水时哪些水面相通,退水时鱼又沿着哪些河槽离开。
归档资料还记有两个很小却很有分量的尺寸线索:泰国三处地点报告过二至六厘米的幼鱼;Songkhram 河在十一月捕到十至十四厘米的幼鱼。它们不是全国统一的幼鱼长度表,更不能用来倒推出精确年龄。不同地点、年份、采集方法和发育速度都会让尺寸不同。三处二至六厘米幼鱼的地点,分别是清莱府清盛、那空帕侬府 Tad Phanom 和乌汶府 Khemmaratch。它们与 Songkhram 河的十一月记录分属不同采集点,不能拼成同一批鱼的生长曲线。
同一资料记载,一月至八月都能见到卵,而多数渔民报告五月至七月最多;二至四厘米幼鱼的报告则出现在七月至十一月。它也把产卵位置留下为尚待厘清的问题:资料认为大型成熟鱼没有在泛滥平原被观察到,更可能在主河道内某些生境产卵,卵或仔鱼再有一部分随水漂向泛滥平原的育幼水域。这个判断是当时对资料的解释,不能把主河道内的具体产卵地点写成已经确定的坐标。
在孔瀑布以上,资料明确以“假说”提出至少有三个暹罗巨鲤群体:上游调查区的一群由湄公河干流进入清莱府等地的支流;那空帕侬府一带的一群会进入 Songkhram 河等支流;乌汶叻差他尼府一带还有一群,也被认为会迁入支流产卵。三群体会在支流本身或相关泛滥平原产卵,是这份假说的内容,尚不能当成逐群追踪后的定论。孔瀑布以下的部分则被写为似乎只有一个群体,主要产卵区被推测在金边上游的湄公河河段,Sesan 支流水系也只是“可能”地点。
食物清单里有河流涨水的影子
FishBase 摘要列出的食物包括藻类、浮游植物、被淹陆生植物的果实和碎屑。把这些项目放在一起,能看出暹罗巨鲤的取食背景比“吃水草”宽得多:藻类和浮游植物属于水体中的细小生产者;碎屑是进入水中的有机残留;被淹植物的果实则把河岸和洪泛区的季节变化带进了水下。这不是一张每餐都要照着吃的菜单,也没有给出各流域、各季节或每尾鱼胃内容物的比例。
尤其值得留意的是“被淹陆生植物的果实”。它并不是说这种鱼只要看见果树就会聚集,也不表示每个洪泛区都有相同的植物。这个条目所保留的是一种连接关系:河水进入陆地时,原本在岸上的植物材料可能进入鱼能够利用的空间。于是,泛滥平原不只是幼鱼出现的背景,也可能改变食物从哪里来。FishBase 还记载该鱼会进入被洪水淹没的森林;这与食物清单中来自陆生植物的果实相呼应。水域扩展时,鱼所能进入的空间和可接触到的食物也不再只限于原来的河槽。
一项泰国研究怎样从细胞里看见这条鱼
2018 年的细胞遗传研究把问题带到了肉眼看不见的尺度。研究者分析了来自泰国湄公河流域不同支流的十二尾雄鱼和六尾雌鱼,标本存入孔敬大学理学院生物系细胞遗传实验室的鱼类馆藏。每个个体至少分析三十个中期分裂相,以确认二倍体数、核型结构和荧光原位杂交结果。这个样本设计说的是十八尾用于细胞遗传分析的个体,不是全泰国数量估计,也没有意图用它替代河流中的分布调查。
研究报告的二倍体数为 2n=98,核型由十八个中着丝粒染色体、三十四个近中着丝粒染色体和四十六个近端着丝粒或端着丝粒染色体构成,染色体臂数 NF 为150。对不熟悉核型的人来说,这串数字不是给看鱼者增加一道考试题,而是在给一个物种留下可重复比较的遗传学坐标。外部形态会随拍摄角度、损伤或发育阶段而难以读清,染色体数和组成则需要在实验室中以另一种证据方式确认。
研究还定位了两类核糖体 DNA:5S rDNA 位于第27对染色体,18S rDNA 出现在第22、23、40和41对。这些位置不能拿来判断一张照片里的鱼是否就是暹罗巨鲤,也不能据此判断某段河流里还有多少个体;它们的价值在于为后续细胞遗传比较提供了明确参照。当形态、生态记录与遗传研究各自回答不同问题时,才不至于让一项漂亮的实验结果被误用成所有问题的答案。
eDNA 检出的是水里的遗传信号,不是一张鱼口清单
2025 年一项 eDNA 论文摘要比较了 qPCR 与 dPCR 用于检测暹罗巨鲤的表现。摘要中的结果很直观:dPCR 在31个检测点中检出27处,qPCR 检出14处;在7处已有目视确认的地点,dPCR 全部检出,qPCR 只检出3处。这说明在这项研究的条件和样本中,dPCR 的检出更灵敏。它也说明方法比较可以从同一批地点里得出很具体的差异,而不只是写一句“新技术更先进”。
不过,27个检出点并不是27尾鱼,14个检出点也不是只剩14尾。eDNA 测到的是水样里可检测的遗传物质信号;水流、取样位置、保存条件、扩增方法和阈值都会影响能否检出。论文摘要讨论的是检测和相对丰度的方法,不能把一串地点数直接改写成种群规模。当前可读到的摘要也没有说明这31处和7处具体在哪个国家或水系,因此没有理由把它们写成泰国全国结果。对读者而言,最有用的理解是:eDNA 能扩展调查者在水面下寻找痕迹的能力,但仍须同现场观察、采样设计和地点信息一起解释。
从幼鱼近景看身体比例
加藤英明频道这段约8分钟的影片,先呈现柬埔寨出行画面,后半段转到室内鱼缸展示。约6分16秒起,一尾体色较浅的小型个体出现在带刻度的透明容器内,可连续观察眼、口、鳞列和胸鳍;约6分37秒拉远后,还能看到容器和鱼的整体轮廓。它与文中深色大型个体照片提供了不同的外观视角,不能将容器里的鱼当成泰国河流现场,或用两组影像直接计算生长速度。