下喙尖怎样进入螺壳
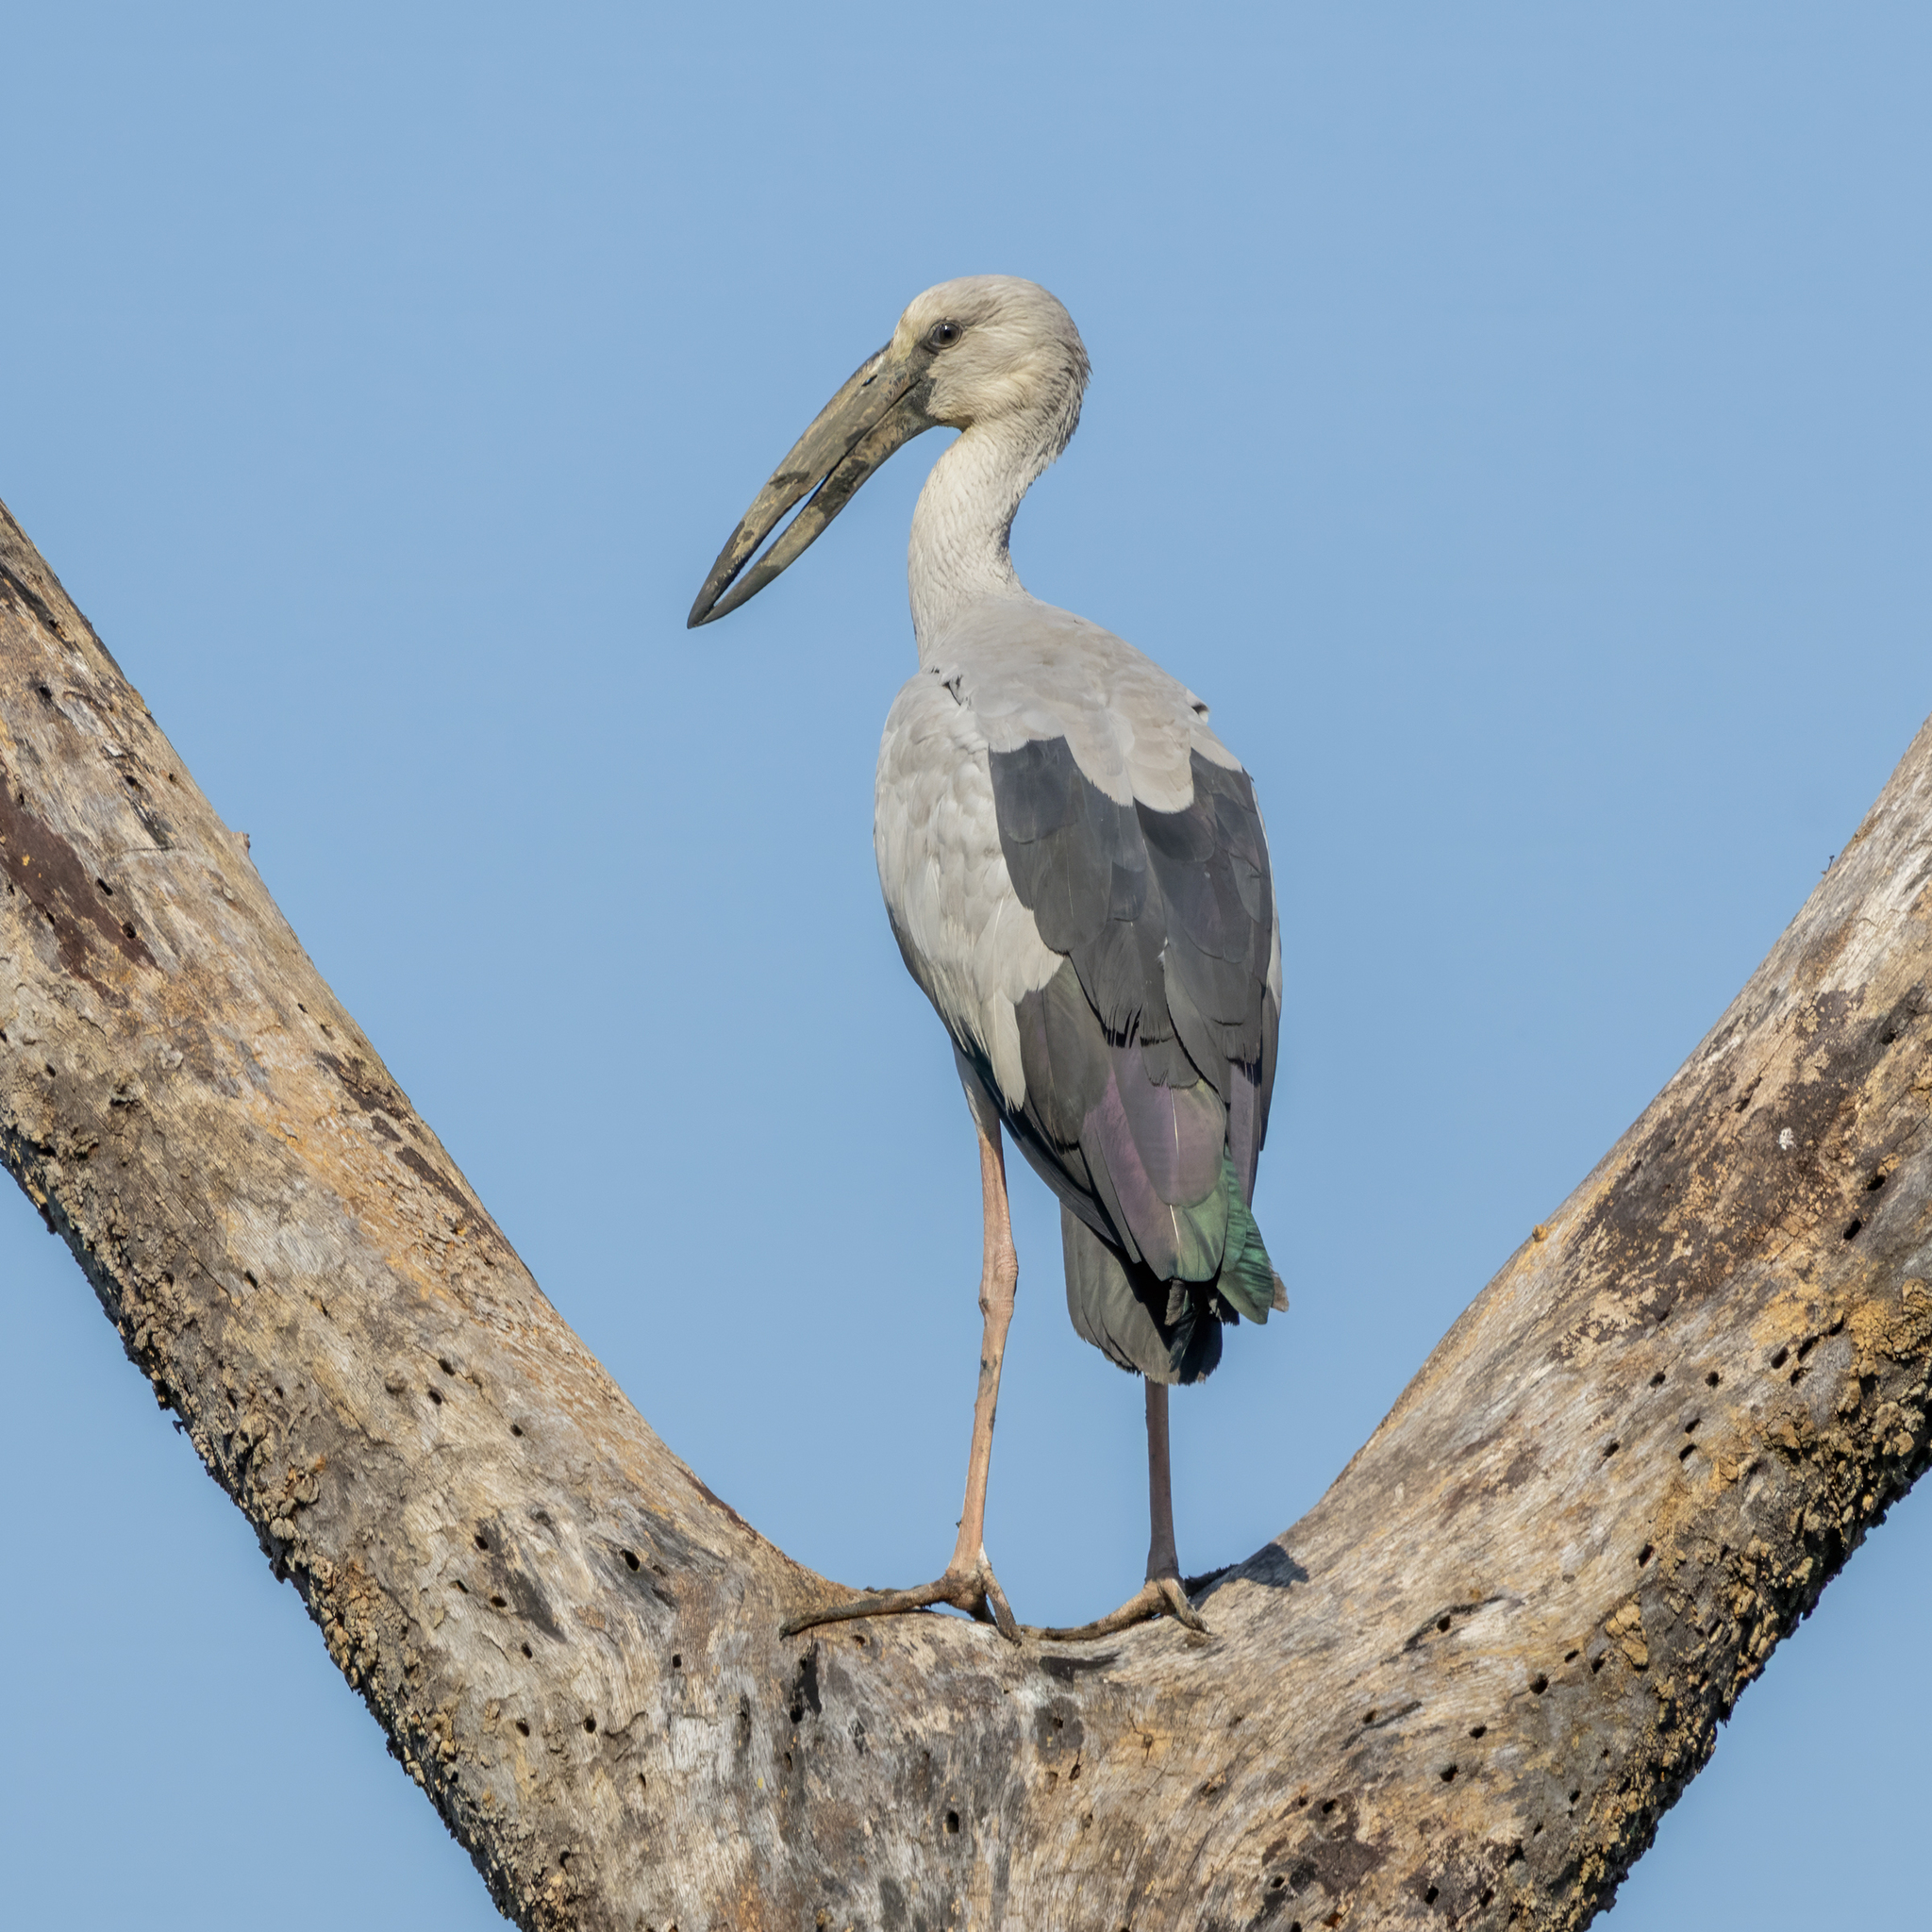
动物多样性网络的物种综述描述,钳嘴鹳下喙向下弯,除喙尖外不与上喙相接;幼鸟则在羽色上保留褐色痕迹,可和成鸟区分。这个外形特征本身并不自动解释取食,但佛统的实地观察补上了动作:鸟会在漂浮植物与稻秆下方或旁边,用微微张开的喙探入水中。找到螺后,它迅速合喙,把螺钉在地上,再以较长的下喙尖端顶进螺的厣口。
这里的“开厣”不是把整个壳压碎。研究者记录的顺序是:厣被打开后,鸟把两片喙伸进去,提起螺,甩动喙,使软体脱离壳,然后吞下肉,留下壳和厣。论文把这类浅水探寻称为 tactolocation,也就是以触觉定位为主的搜寻。微张的喙在浅水里接触食物,找到螺后才夹住并固定;搜索和开厣是不同的动作。壳口的厣像盖子一样挡着入口,取肉要经过这个部位。
处理螺的过程中,硬壳和软体的去向不同。原始研究观察到,鸟取食本地 Pila 螺和福寿螺时没有弄破壳;喙尖伸入壳口,再把肉拨出。取完肉后,一枚外观仍较完整的空壳可以留在田里。这也解释了为什么调查除了数活螺,还收集取食后留下的壳。
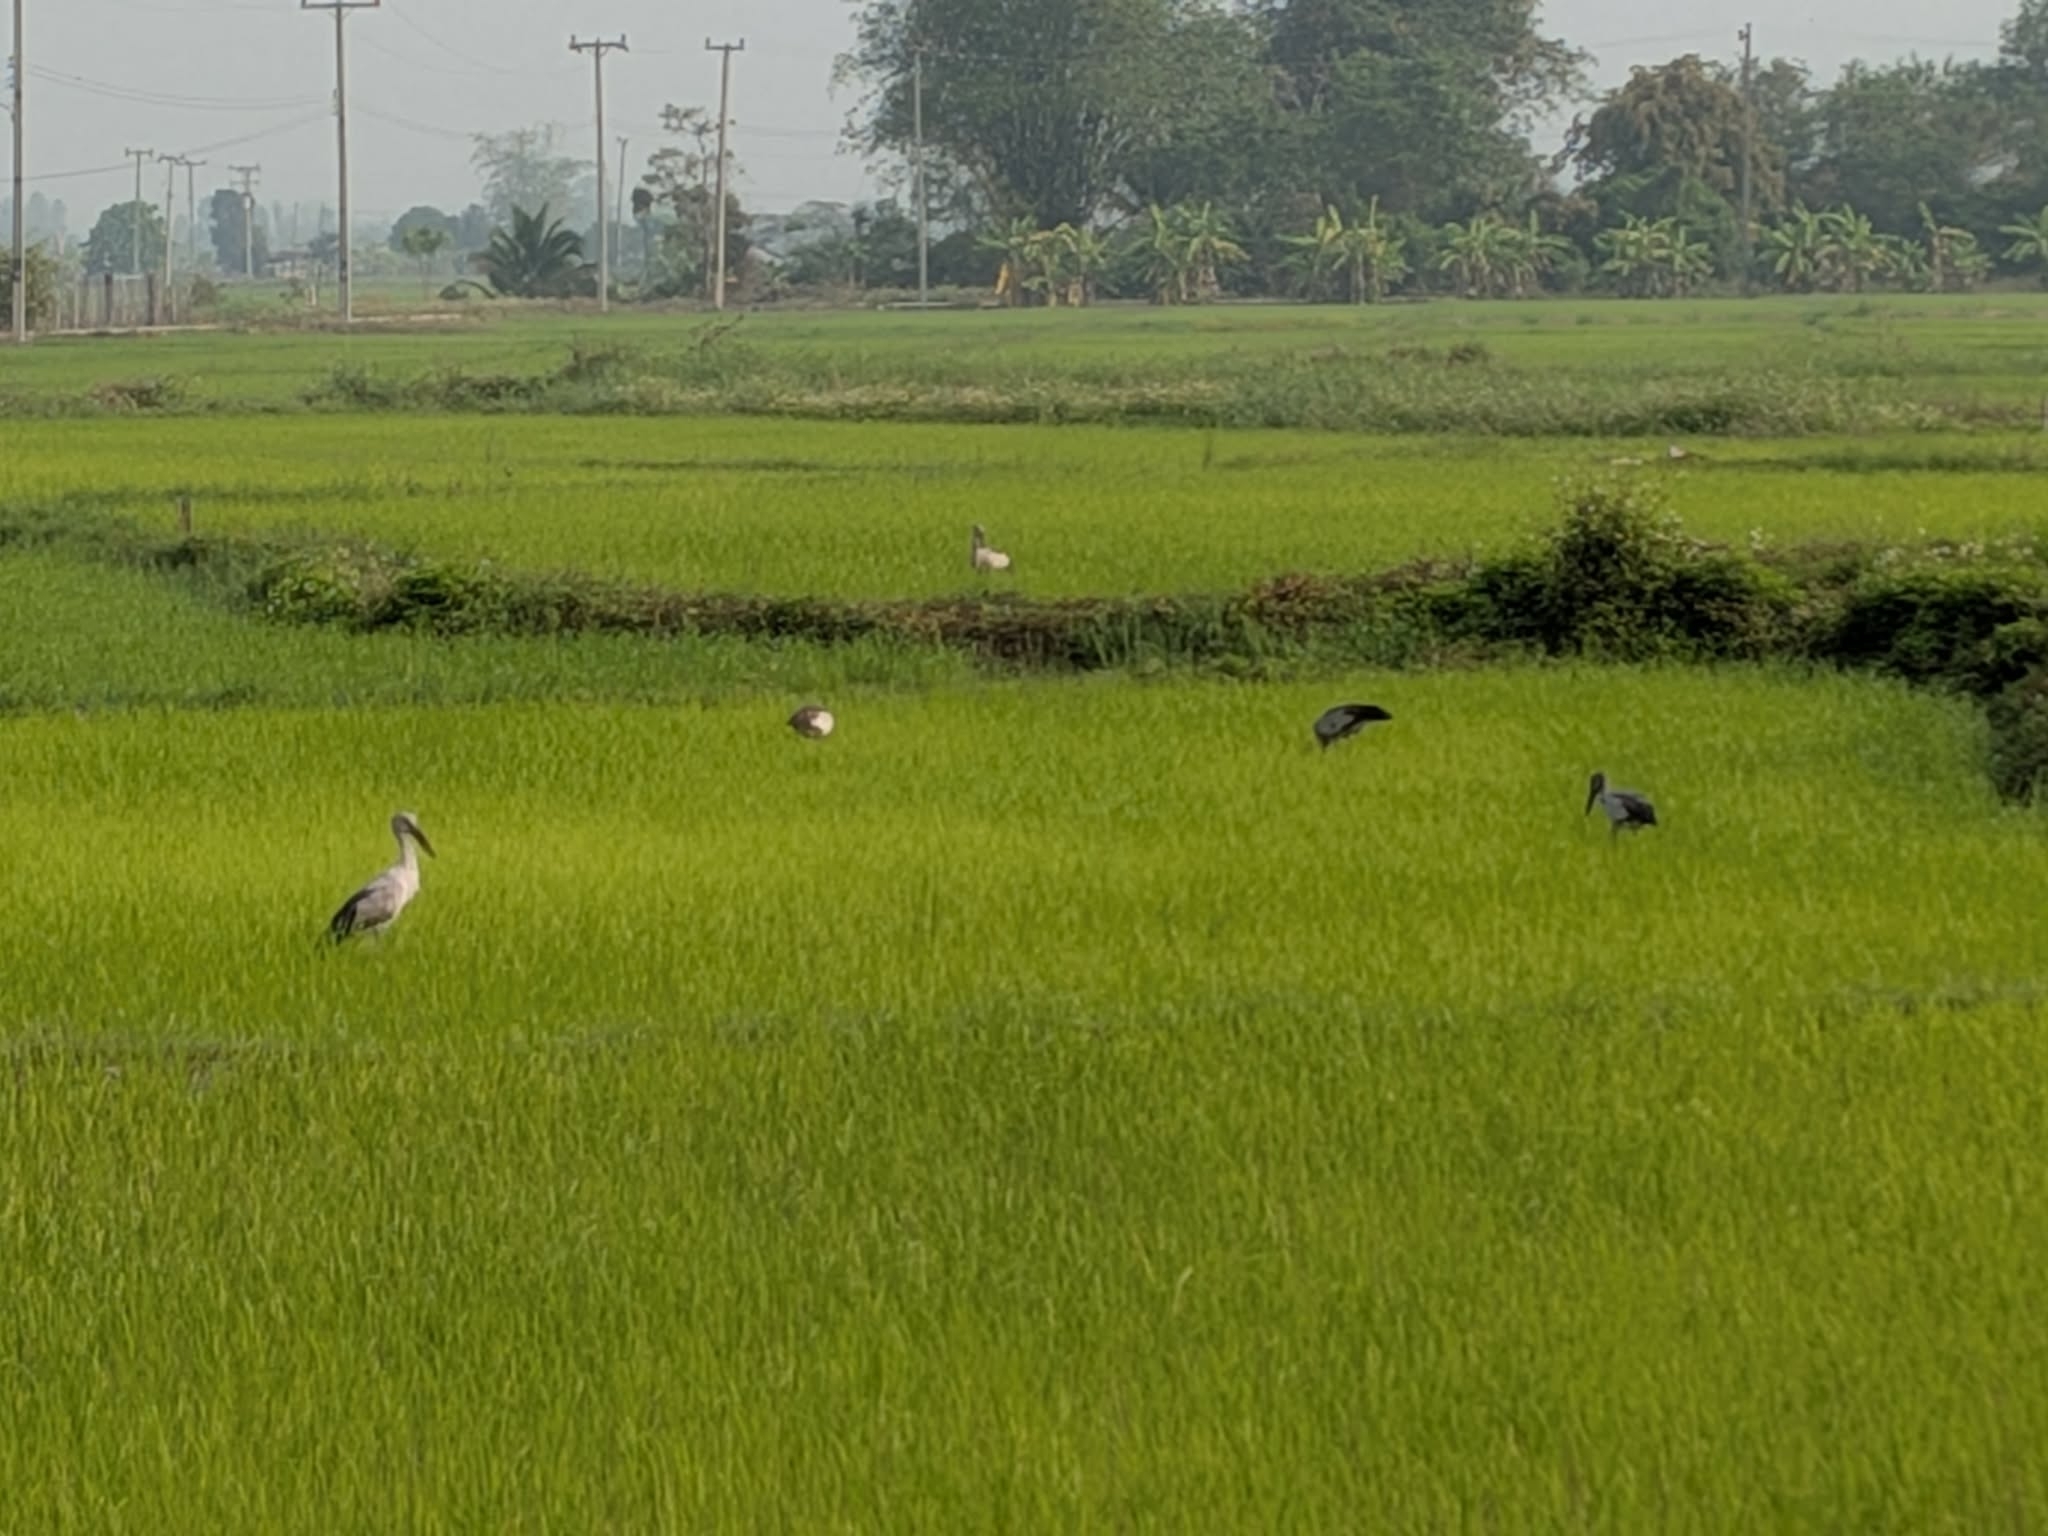
佛统府备耕水田里的鸟群与螺壳
这项研究在泰国中部佛统府进行,地点在玛希敦大学 Salaya 校区以北、3004号道路沿线约16至20公里的水田地块。论文写明,每个地块约两英亩;福寿螺侵染严重。研究者在25个地块数钳嘴鹳并记录首次观察到的取食行为,另在七个地块连续十周跟踪鸟群大小与螺密度,时间是2006年2月下旬至4月。
这些田并非稻子已经长得很高的画面。所有被鸟访问的田都处在稻作前的整地期:稻秆烧过,田里蓄水。论文测得鸟群取食处的水深为2.3至16.0厘米,平均6.4厘米,样本为24个鸟群;群体大小从6到133只。这样的条件说明研究中的“农田”有很具体的水文和作物阶段。讨论部分还指出,鸟会反复回到仍有螺的田,却没有去稻秆高而密、可能难以找到螺的田。
作者讨论了备耕蓄水怎样改变食物的可获得性:烧过稻秆后不久田里灌水,螺从休眠洞穴出来,生长、繁殖,鸟也能在田中接触到它们。等稻秆高而密时,找到螺可能更难,鸟的到访也随之不同。水深、稻秆和螺活动要放在一起看;仅知道田里有福寿螺,还不足以说明鸟会在那里停留。
田间观察并不是只数地上有多少空壳。研究者把刚被鸟吃过的螺,同较早死亡的螺分开:前者的壳和厣上还附有新鲜肌肉,或壳旁还有内脏团、白蛋白腺等软组织。活螺的高和宽用游标卡尺量到0.01毫米后放回原田;死壳带回实验室测量。这个区分不可能消除全部不确定性,却说明“被吃过”的判断有具体的田间线索,不只是看到一个空壳便归因给鸟。
为比较螺的体型,研究在鸟已于七块田取食后,以1米乘1米的样方抽取活螺和被捕食的壳,论文注明样方数n=20。这个设计告诉我们一个重要限制:结果来自已经有鸟活动的田地、特定的取样格子和该季节的样本。它特别适合讨论鸟取走了什么大小的螺,却不能估算整个府、整个年份的福寿螺总量。
同样,研究记录的鸟群数字是到田的群体,不是每一只鸟一整天的摄食量。结果中记录的到访鸟群为6至133只,平均39.5±30.5只,样本为24个群体;鸟群大小与田内活螺和已被捕食螺的合计丰度有正相关(rs=0.6112,p=0.0082)。这个较小的系数回答的是“螺较多的田是否有较大的鸟群”,同后文“被捕食百分比与访鸟数”的rs=0.902不是同一个问题。把两者混成一条“鸟越多、螺越少”的证据链,会把研究中两个不同的比较方向颠倒。
这些方法把水深、鸟群、壳和螺的大小放在同一片田里比较,也留下了农田的复杂性:耕作安排、渠道输入和周边植被都可能改变螺的数量。钳嘴鹳是其中的捕食者,不是脱离水位和作物阶段单独运作的“除螺机器”。
相关的是“被捕食百分比”和访鸟数
论文用了一个容易被转述错的统计关系。为衡量捕食压力,研究者把每块田中被钳嘴鹳捕食的螺所占百分比,和访问该田的鸟数作图比较。得到的是正相关:rs=0.902,p=0.0001。换成朴素的话说,在这批比较里,访鸟数更多的田,被记录为已遭捕食的螺比例也更高。这个系数并不是“螺丰度下降和访鸟数的相关系数”,更不能直接译成“鸟数每增加一只,螺就按固定比例减少”。
研究按鸟的到访和群体大小设低压力、高压力类别,并另列一个无鸟对照地点。低压力类别有12块田,平均群体为16.4±15.3只;高压力类别有13块田,平均53.0±31.8只。对照点的名称会让人误以为它始终没有鸟,脚注却提供了关键限定:周围果园持续清除后,钳嘴鹳在多年后第一次访问了该处,表中列出总访鸟数200只。对照的意义是当时的分类比较,不是一块永远没有鸟的田。
七块连续观察田的图也不能读成单线条的因果故事。论文说,螺丰度与来访鸟数一同下降;但最后四周农民给田里灌水时,邻近灌溉渠的新螺随水进入田中。这个例外正好提醒我们:田里的螺数由捕食、灌排水和外部输入一起塑造。研究支持钳嘴鹳是福寿螺的捕食者,并显示其捕食与田间螺状况有关;它没有证明只要有鸟,就会把某块田的螺因果性地清除到零。
大螺取肉,小螺整只吞
这篇论文研究的福寿螺写作 Pomacea canaliculata。它与文中提到的泰国本地 Pila 螺有不同的属名,不能因为两者都被鸟吃就当成同一种。论文引言回顾,钳嘴鹳原本利用大型本地淡水螺,随着外来福寿螺扩散,其食物也发生变化。这段背景引用的是更早文献,说明这次调查为什么专门关注外来螺;2006年的田间结果则提供了更直接的取食与体型记录。
研究按繁殖潜力把螺高分为两类:不超过25毫米的是幼体或未成熟螺,超过25毫米的是成体或成熟螺。钳嘴鹳明显偏向较大的成体。处理大型螺并不省时:对9次成功取肉的观察,平均耗时61.0±50.7秒;研究中这一类大螺平均长度为63.2±10.99毫米,样本为80。小螺则只需数秒便能连壳吞下。
61秒尤其不能写成每只大螺都需要的“标准速度”。它是很小观察样本的均值,离散度也很大。论文给出的解释是,大螺的处理和取肉成本更高,却能回收更多能量;小螺连着较多不可消化的硬壳和角质厣被吞下。研究者据此用最适觅食理论讨论偏好,而非声称鸟会精确计算某个经济账。
从稻作角度,成体螺的选择也比“吃掉一只螺”更值得关注,因为成熟个体与再繁殖有关。论文讨论认为,这种偏好可能压低螺的繁殖成功,并在作物在田期间帮助控制更可能造成损害的繁殖体型。这里仍要保留原作者的边界:这是针对所调查福寿螺、地点和田间阶段的推论,不能代替农药、人工清除或水利管理的效果比较。
同一套动作,怎样对付田螺和福寿螺
偏向成螺并不意味着幼螺从食谱中消失。田里的活螺和被吃过的螺都按壳高分组,再比较幼螺、成螺各占多少,才能判断体型偏好。若只看鸟留下的大空壳,就可能漏掉整只吞下、没有以相同方式留下壳的小螺。研究同时抽样活螺与被捕食壳,提供了比较这些体型的依据。
论文讨论的取肉动作不只用于福寿螺。作者把它同早先对本地 Pila 田螺的描述相连:下喙尖端通常伸进壳内,软体被拨离,脚不参与辅助。研究者在观察中没有看到鸟把本地 Pila 或外来福寿螺的壳弄破。对大螺而言,壳口的厣像一块合在开口上的盖子;鸟针对的是这个入口和里面的软体,并非把坚硬的壳咬碎;论文记录它会把壳和厣一同弃下。
大螺被取肉后,硬壳和坚韧的厣留在田里;小螺更常被整只吞下,因此也吞进更多不易消化的硬质部分。论文把大螺的能量回报较高列为解释偏好的可能原因,但没有直接测量每一只螺带来的能量。它还提出,留下的小螺仍能长大并繁殖,可能让鸟的食物来源持续存在。这里的“可能”来自作者的讨论,不能读成田间已经验证的长期平衡。
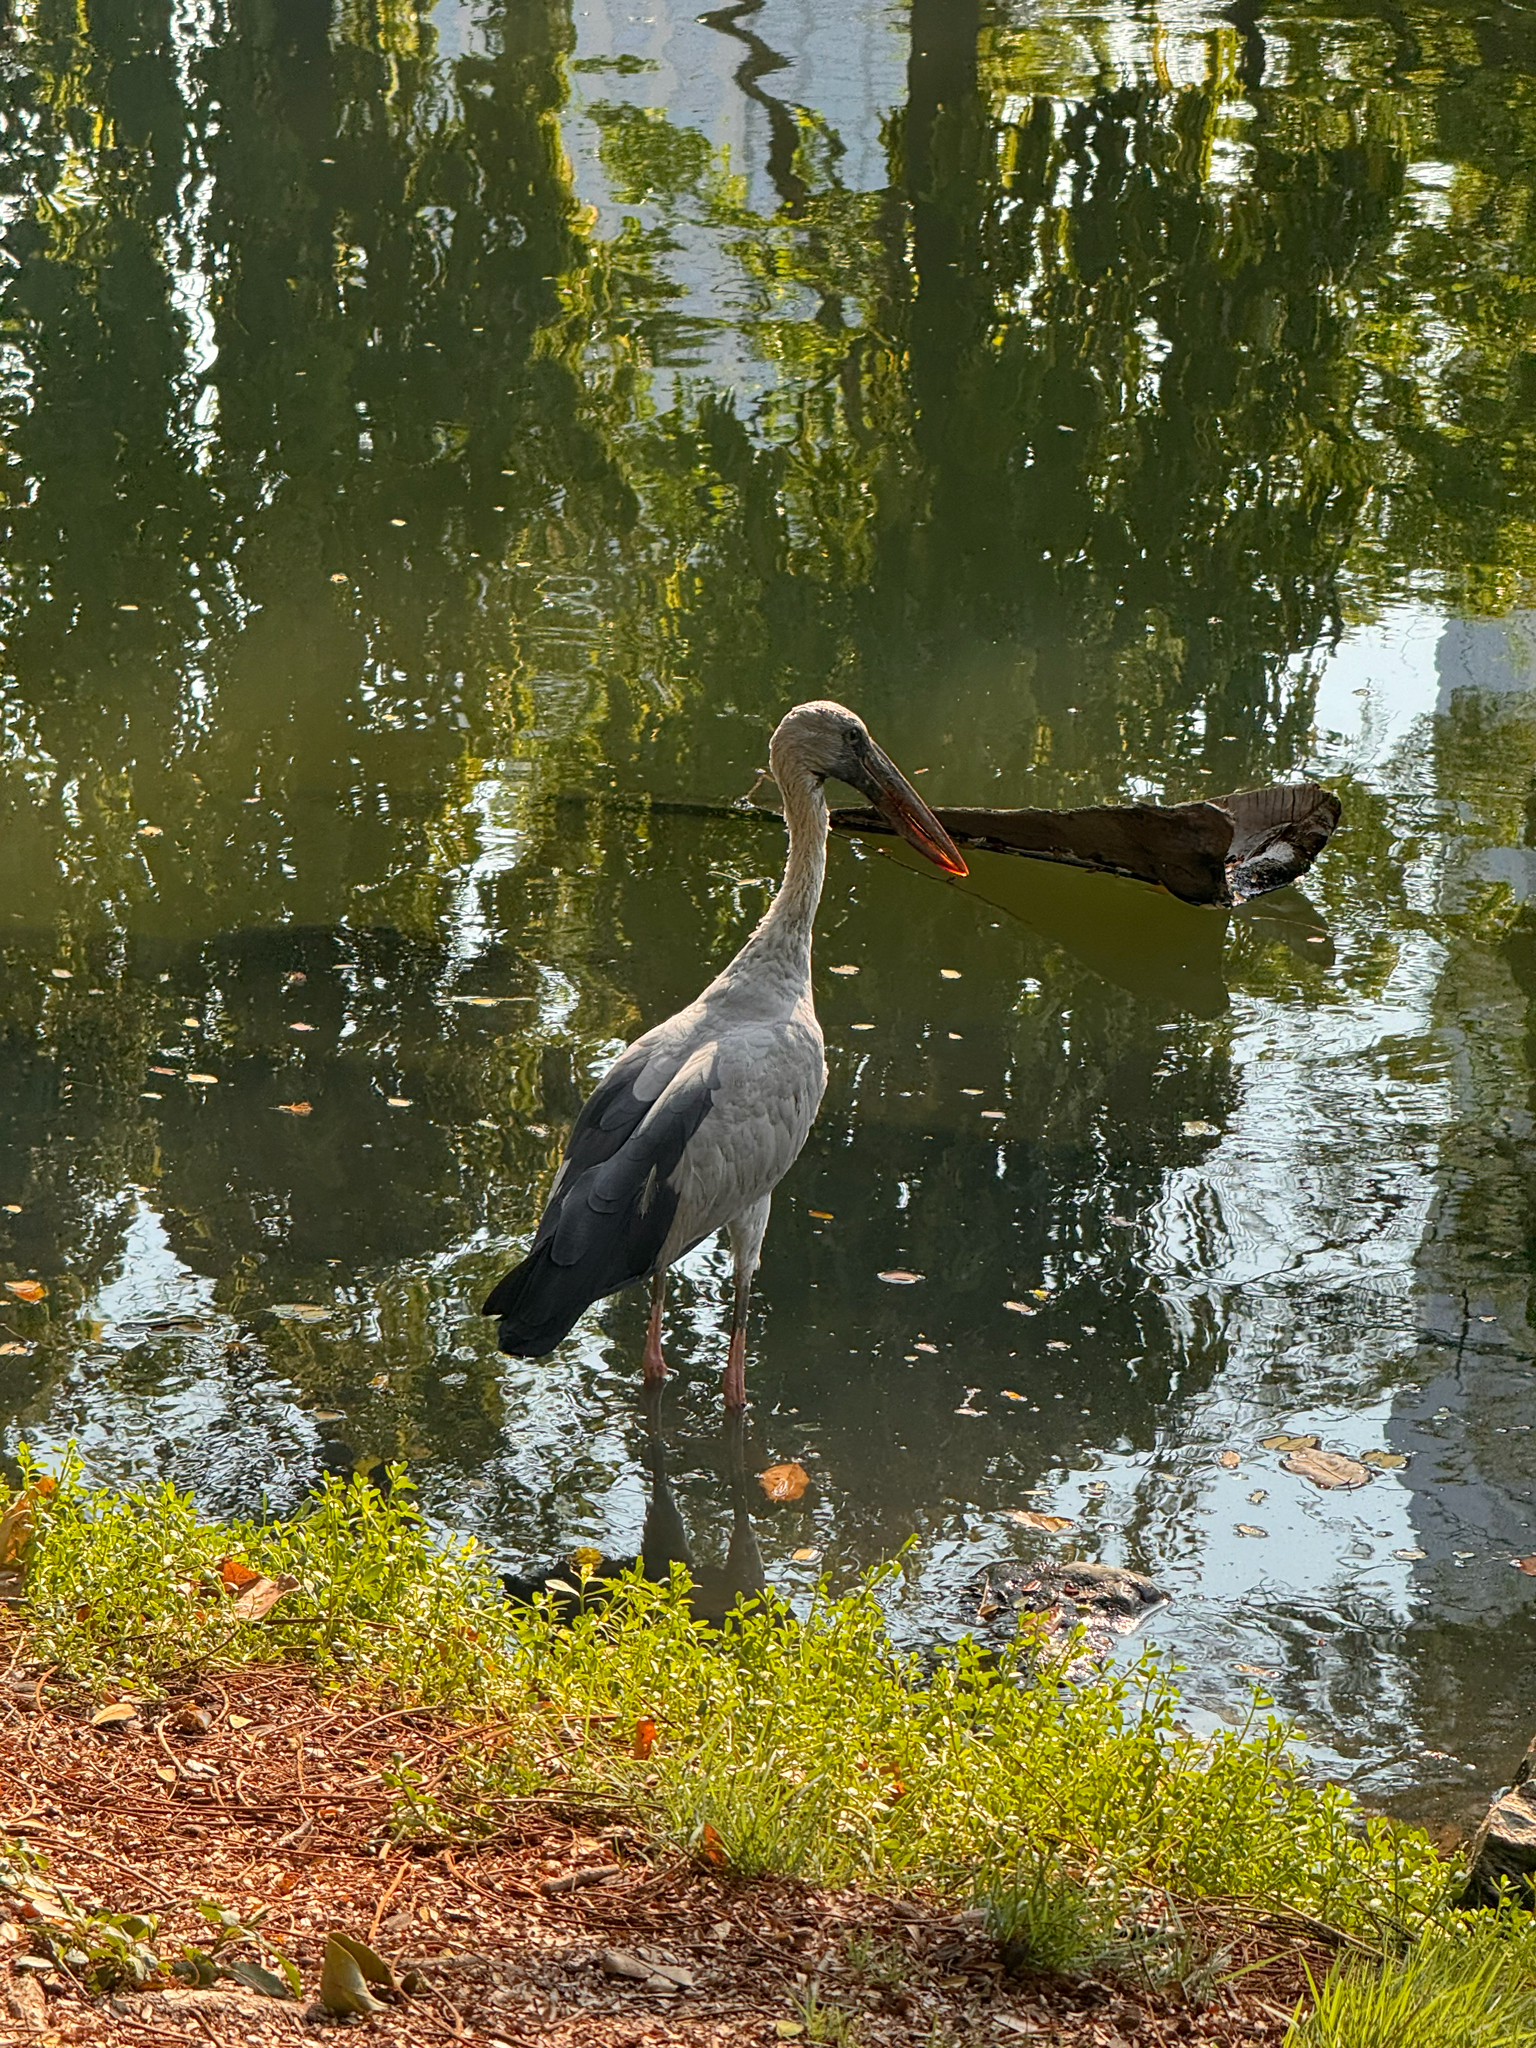
视频发布者将地点记为曼谷机场旁的小公园。画面中的水岸钳嘴鹳,灰白体色、黑翼、长喙和头颈活动都可见。混凝土遮住了喙部下方,片段没有拍到取螺过程;它只补充外形与水岸环境,不承担论文中的取食证据。佛统府的观察更具体:备耕蓄水田里,鸟以触觉探寻并开厣取肉;鸟群到访、螺的体型和灌溉带来的重新输入一起塑造了田间结果。