同一种动物,先放进三种不同的问题
2023年研究共用了22只人工繁殖的成年大壁虎:10只雄、12只雌,约2至6岁,来自不同繁殖者。这个样本量和组成告诉读者实验回答的范围:它比较的是一小组圈养成年个体在标准化情境中的反应,不是自然种群调查。研究者让它们面对三种问题:一是遇到不熟悉的猎物,二是在物体旁看到猎物,三是从不透明盒进入一个新的空玻璃空间。
三种问题看上去都和“新”有关,动作却不同。新猎物测试问的是看见食物后多久发动攻击;物体测试问的是同样的食物一旦靠着其他东西,攻击是否改变;新空间测试则不要求捕食,而是记录个体何时把整个身体移出携带它的盒子。若把这些都称为“勇敢程度”,就会抹掉任务本身的区别。
实验在受控环境进行。研究者为适应其夜行生活,将光周期倒置为12小时亮、12小时暗;测试则在个体的活动时段完成。这样的安排是实验条件的一部分,并不等于野外大壁虎每天都处在同样的温度、湿度、光照和人造食物环境。实验最有价值之处不在于模拟所有自然细节,而在于让每一项刺激的差别足够清楚,能够比较反应时间。
新猎物:研究者量的不是“吃没吃”,而是先等了多久
食物试验以成体家蟋蟀作为熟悉食物。第一次重复用黄粉虫幼虫作为较不熟悉的食物,第二次则用沙漠蝗。每一轮有四种呈现:天然色的熟悉蟋蟀、着色的熟悉蟋蟀、天然色的较不熟悉猎物,以及着色的较不熟悉猎物。把颜色和食物类别分开,是为了不把“看起来颜色不同”误当成“食物种类不同”的效果。
研究者定义了两种延迟。capture latency 从个体首次注意到食物,到第一次攻击为止;strike latency 从它最后一次专注猎物到发动攻击为止。前一个数包含较长的观察和接近阶段,后一个数更贴近最后发动前的一段。研究者用 BORIS 对录像作编码,影片以半速播放,时间精度为0.001秒;若60秒内没有攻击,该次记录为60秒。这样,“没有动作”不是被删掉的空白,而是以预先规定的上限进入分析。
编码精度不自动代表每一种指标都同样稳定。40%的录像另由一位不了解研究目的的观察者复核:capture latency 与原观察者高度一致,Spearman rs=0.915;strike latency 的一致性则较低,rs=0.357。结果部分因此同时报告两种延迟,但阅读时应知道,前者在这次盲复核中更能由不同观察者一致量到,后者对应的是更窄的“最后专注到攻击”片段。
结果显示,大壁虎对较不熟悉猎物的攻击更迟疑。在 capture latency 分析中,论文报告非常强的证据;用 strike latency 分析时也得到强证据。猎物是否被着色没有显示相应差异。这里不能把“迟疑”理解成完全拒绝食物:它描述的是攻击所需时间增加。作者还特别说明,他们只能确定个体至少一年未接触这些猎物,对部分个体不能保证是真正从未见过。因此,较准确的说法是“在这个设计中,对较不熟悉食物攻击较慢”。
第二次重复换用新的较不熟悉猎物,是为了减轻第一次接触后熟悉化的影响。两次试验之间隔14天,每天只安排一个 session,session 之间隔4天。这样的安排并没有让实验变成野外观察,却让“同一个刺激已经见过一次”的问题得到处理。它也解释了为什么文章不该把黄粉虫或蝗虫写成这种物种在泰国自然环境中的固定食物清单:在这里,它们是为比较反应而选的刺激。
物体旁的食物:熟悉人工叶也会改变攻击速度
第二组试验比“新物体会不会让它害怕”更有意思。研究者先把一片人工叶放入每只个体的饲养箱5天,作为熟悉物体。第一次重复以一块裁切过的蛋盒纸板作新物体,第二次则用纸质卫生纸芯。每轮比较三种画面:只有熟悉蟋蟀的对照、熟悉蟋蟀在熟悉人工叶旁,以及熟悉蟋蟀在不熟悉纸板物旁。
结果不是只有新物体才带来迟疑。无论猎物靠着的是熟悉人工叶还是不熟悉的纸板物,个体攻击都比“只有猎物”的对照更慢;这一点在 capture latency 和 strike latency 两种分析里都成立。于是,这项实验更适合被读成“物体邻近会改变捕食反应”,而不是一句“它们只怕新东西”。
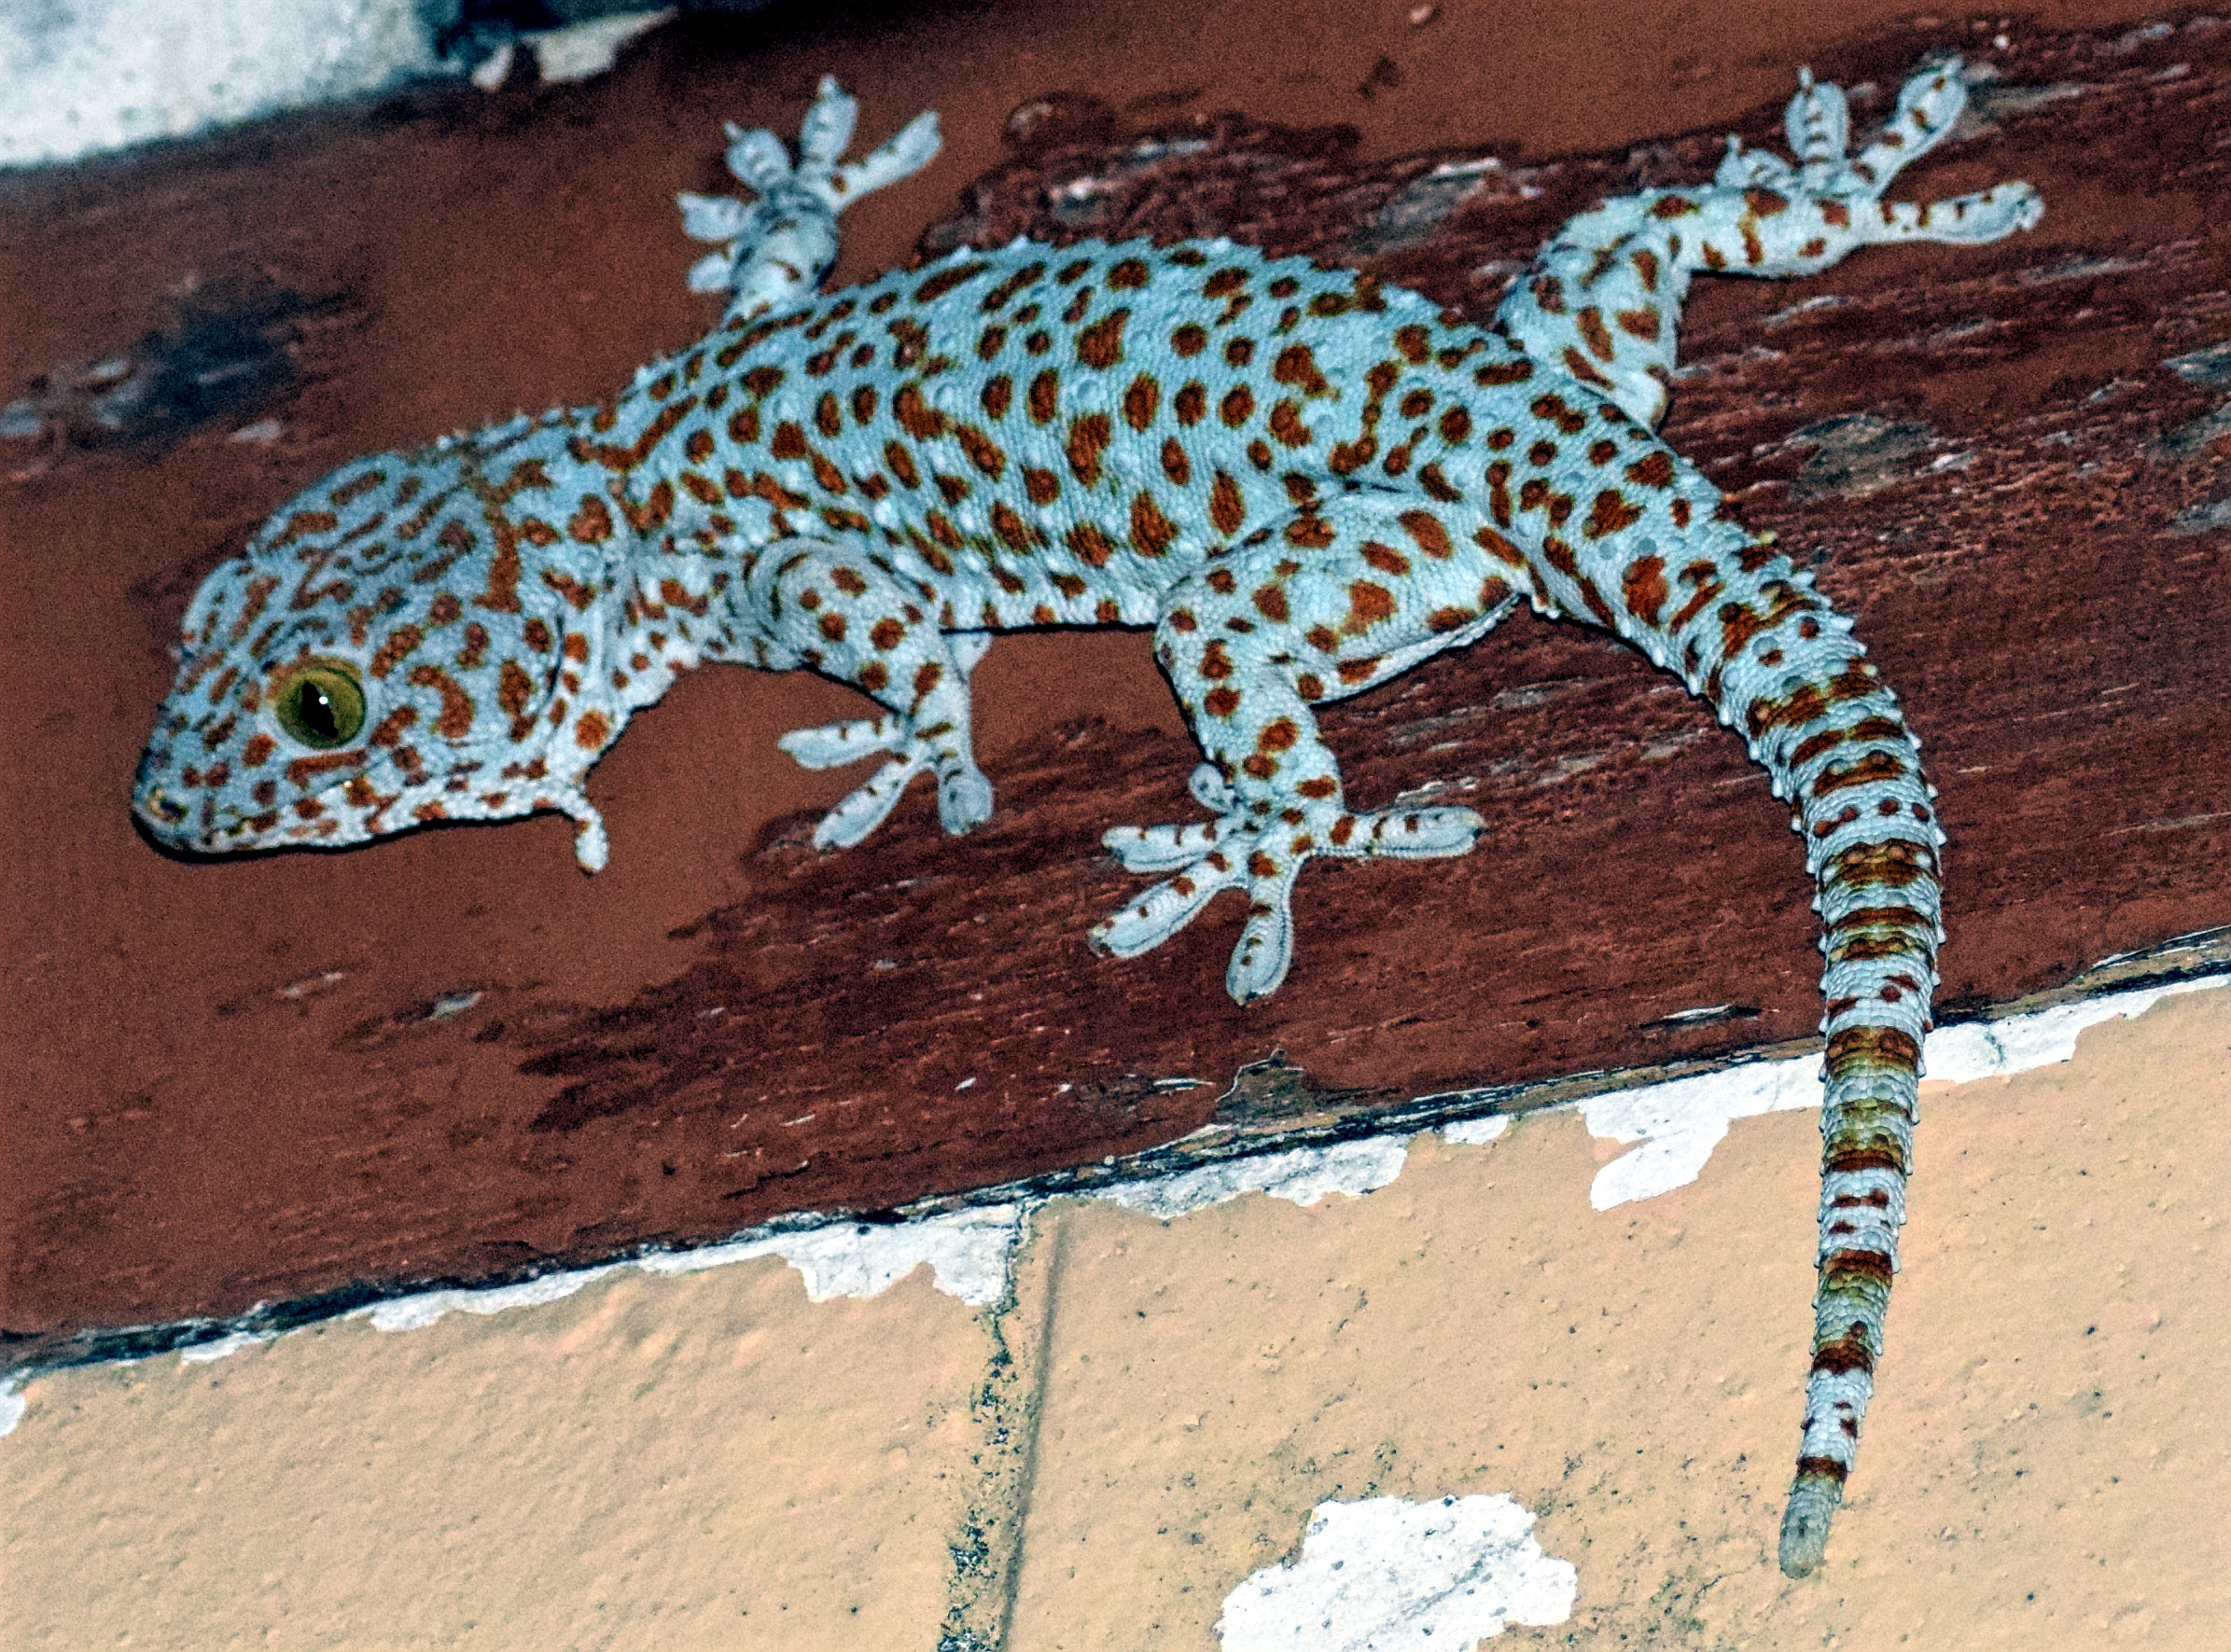
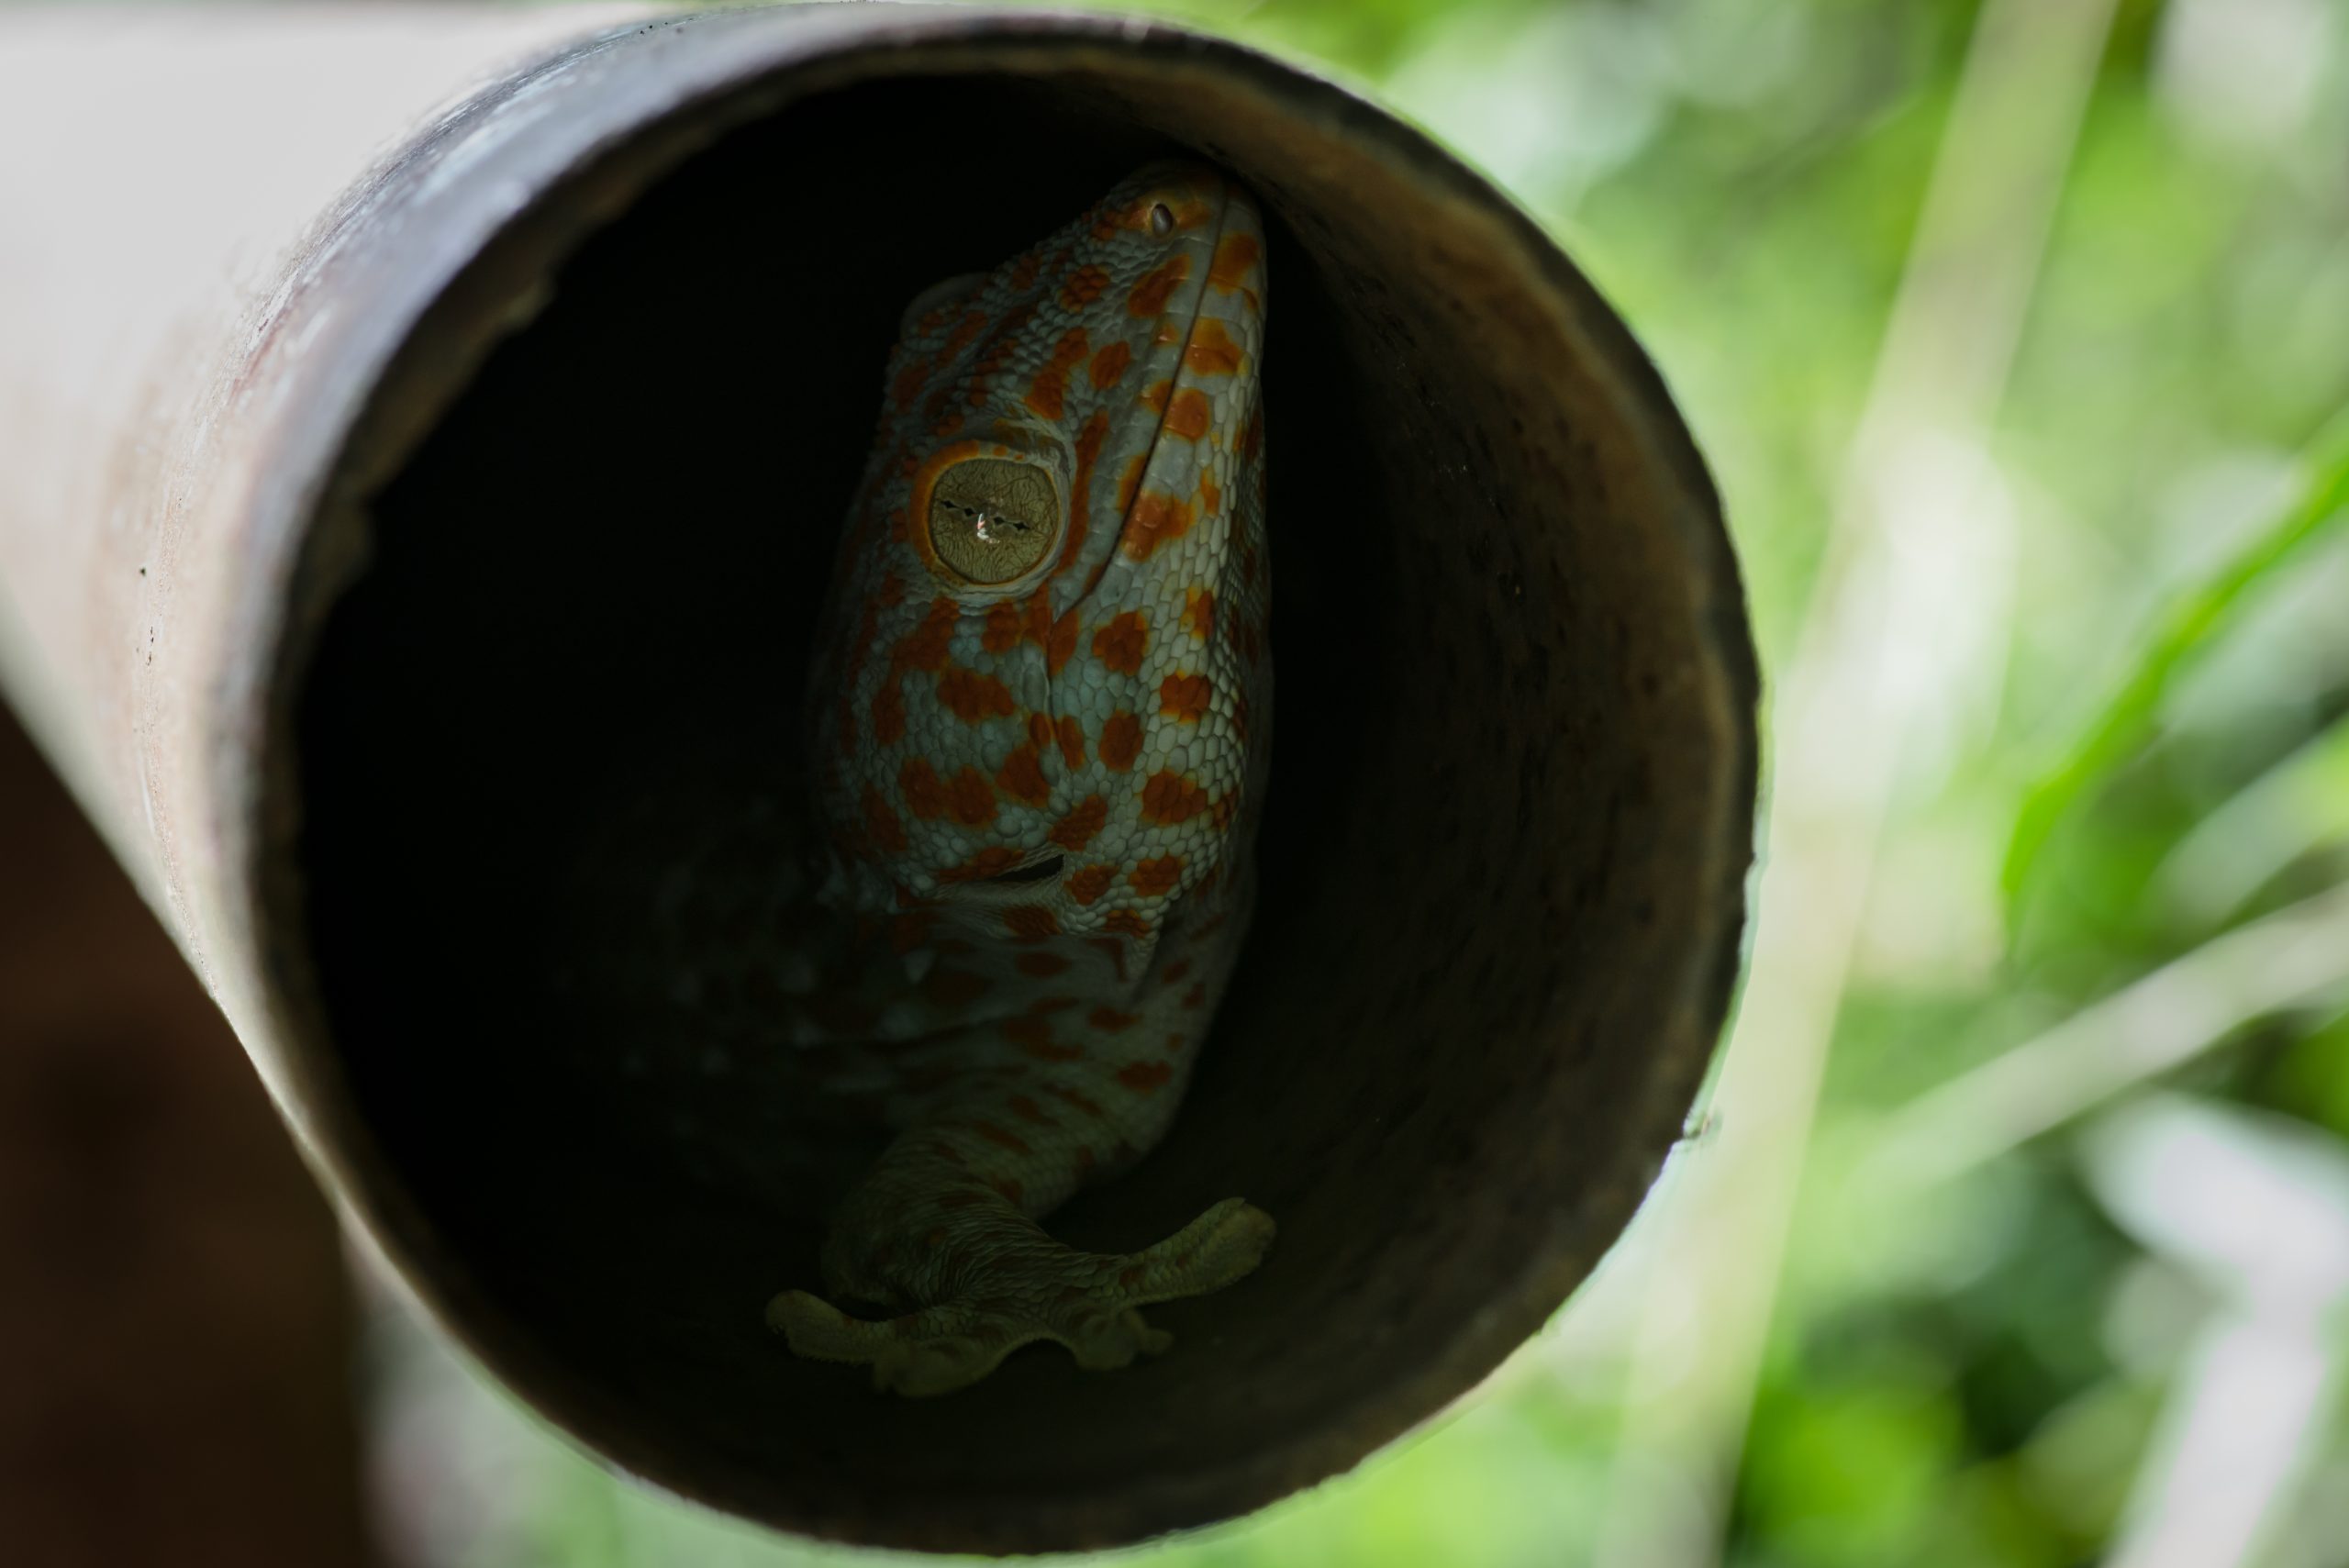
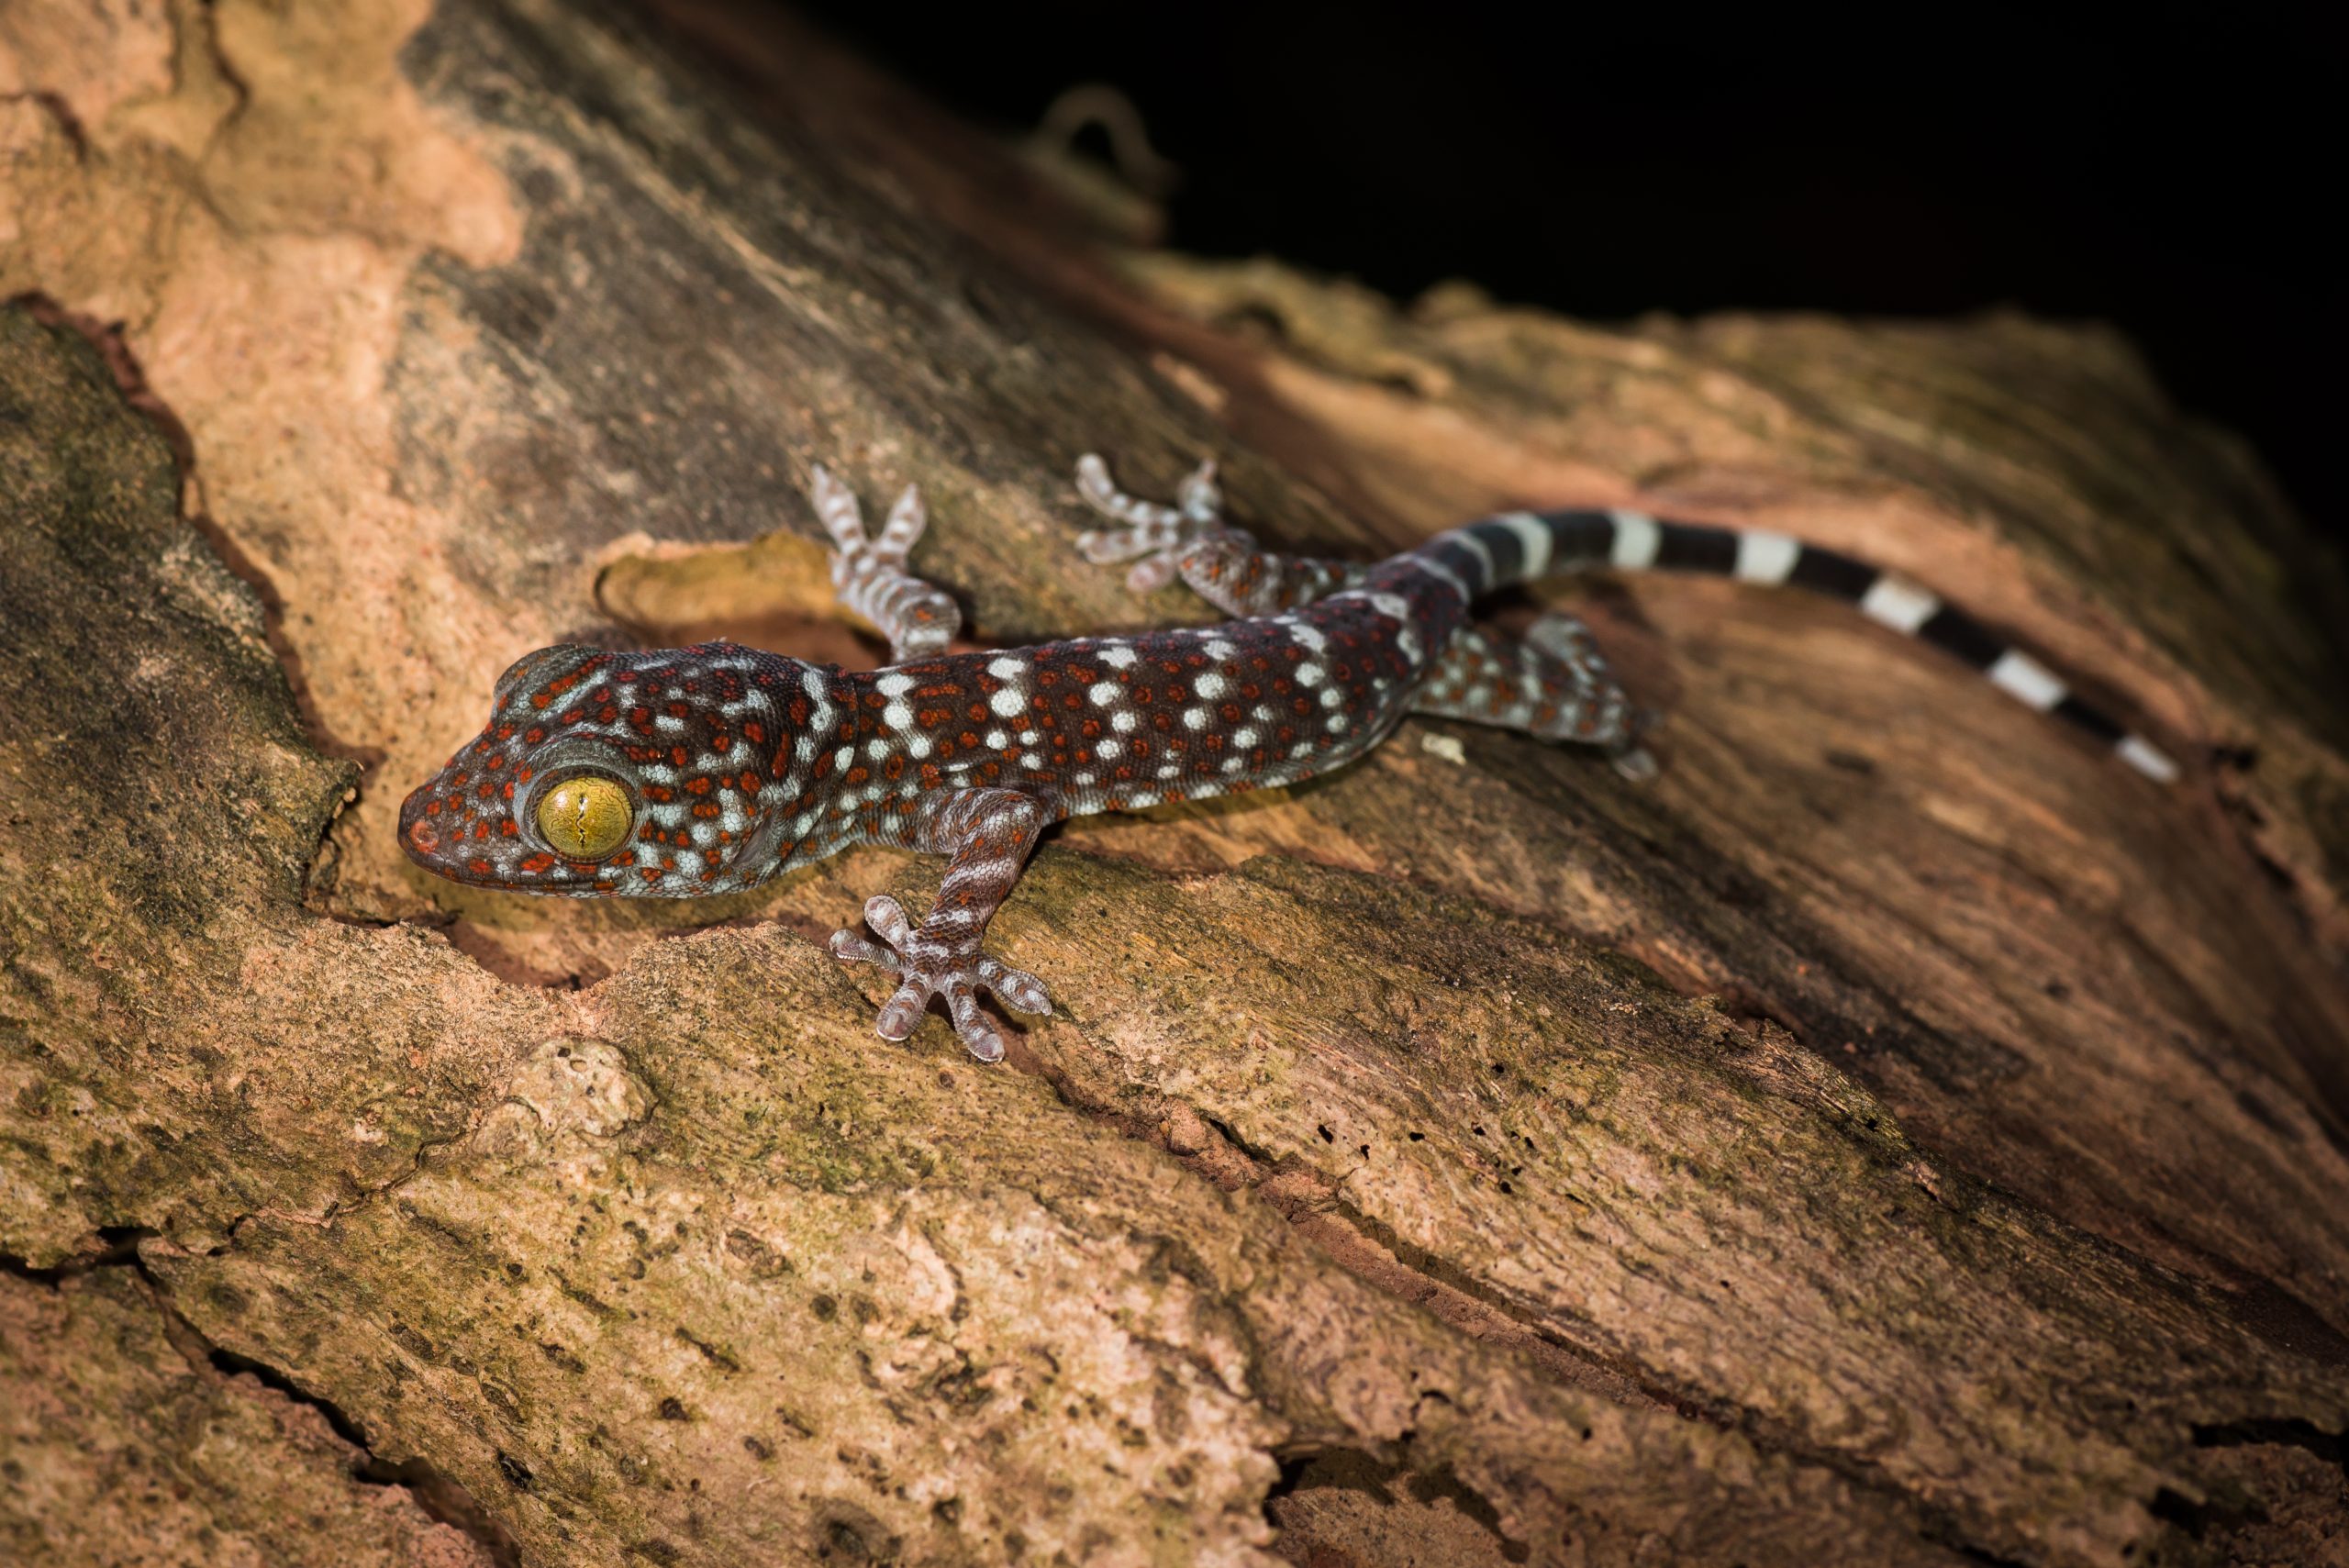
这也让日常看图时的推断更克制。第二张照片里能看见一只个体的头部、斑纹与附着姿态,却没有拍到它注意猎物的起点、物体距离或攻击动作。静态照片适合描述外观,实验视频编码才适合比较延迟。即便一只动物停在树枝、墙缝或人造结构旁,也不能直接套用蛋盒和人工叶的统计结果,因为真实环境中的背景、距离和先前经验都没有被照片留下。
实验采用“熟悉物”和“新物”两类刺激,目的不是给所有环境物件分级。人工叶之所以算熟悉,只因它在该个体的饲养箱中预先放了5天;蛋盒纸板和纸芯之所以算新,只因研究者确认其对个体陌生。熟悉与陌生在这里是特定实验历史,不是物体本身永远具有的属性。
新空间:从盒子出来,比攻击猎物更慢
空间测试的动作与前两种试验不同。研究者先把个体放进不透明塑料盒,缓慢带到一个空玻璃测试箱中央,独处5分钟平静下来,再打开约三分之一盒盖。个体随后独自在测试箱内20分钟。研究者将尾基越过盒沿、全身离开盒子的时刻作为 exit latency,不把尾巴单独伸出计作离开;若20分钟未离开,按1200秒记录。
空间测试结束后,研究者在盒子上方约5厘米处挂上一根浅灰色PVC管,再观察20分钟,以记录是否接触这个新物体。结果是没有个体触碰PVC管。它是一个很明确的实验观察,但也只说明这批个体在该测试箱、该时长与该摆放方式中没有发生接触;它不等于大壁虎会回避所有管状物,或在野外不会使用人工结构。
为了比较三种测试,研究者将食物和物体测试的 capture latency 除以60秒,将离开新空间的延迟除以1200秒,得到相对延迟。分析显示,攻击新猎物或攻击靠近新物体的猎物时,反应比离开新空间时更快;新猎物和新物体这两种情境之间没有检测到差异。换句话说,在这个实验中,“先走进新的空空间”引出的迟疑最强,不能由吃一只新猎物的速度简单预测。
重复性低,意味着不能用一次反应盖住一个个体
研究还检查了同一只个体的反应是否在多次测试和不同情境间保持一致。食物测试内的 capture latency 有可重复性证据,但数值只有 R=0.101;物体测试内为 R=0.190。把各测试放在一起时,重复性同样较低,为 R=0.12。数值低并不表示每次反应都毫无规律,而是表示少有个体能在各种任务中稳定地呈现同一强度的延迟。
有一个跨情境关系值得单独说:攻击新猎物所需时间与离开新空间所需时间有相关,Spearman rs=0.573;但其他可能的跨情境组合没有相关。它同时给出两层信息:部分反应可以一起变化,而整体上又不足以把“对新事物的反应”当作一个在所有场面都不变的单一特质。研究者也用个体图示说明,只有少数个体在各情境中持续较慢或较快。
这对解释视频或照片很重要。一段画面里某只大壁虎迅速扑向猎物,最多说明那次画面的一个动作;另一段里它长时间不出遮蔽物,也只说明那个地点和时刻的可见反应。实验的结论不是给动物分出永恒的胆量,而是提醒观察者先问:它面对的是食物、食物旁的东西,还是一个必须离开熟悉遮蔽物的新空间?
春武里夜间观察提供的,是另一类证据
2023年实验与泰国野外或半自然现场并不是同一件事。作为地点明确的背景,2006年一项研究的公开摘要记录了春武里府 Khao Khiao–Khao Chomphu Wildlife Sanctuary 内 Khao Khiao Open Zoo 访客区的大壁虎觅食。摘要报告个体觅食在18:01至09:00,出现高峰在18:01至20:00,退回高峰在04:01至07:00;主要食物项包括鳞翅目、直翅目与鞘翅目昆虫。
这组夜间时段和食物类群让读者知道,泰国现场观察问的是“何时出现、何时退回、记录到哪些主要昆虫类群”;2023年实验问的则是“面对控制过的刺激,攻击或离开用了多久”。前者不能替实验判断个体如何面对蛋盒、PVC管或不熟悉猎物,后者也不能替春武里访客区写出全年作息。把两类证据并列而不混写,才能既保留地点,也保留实验真正测到的东西。
用近景观察头部与趾垫
Little Ray’s Zoo Tube 的英语短片提供了与远景照片不同的视角。约25秒,大壁虎伏在白色台面上,镜头从正面拍到双眼、头部的细小鳞片和两侧展开的前趾;可以与考艾圆口内的侧面头部照片对照,看正面和侧面各能呈现哪些轮廓。片中另有讲解者托着动物的镜头,是动物园的展示场景。这段影像没有研究所用的蟋蟀、人工叶或新空间测试过程,也未测量从注视到攻击的时间;它补充的是外观,而不是三种实验的结果。