深潭不是随机挑出来的
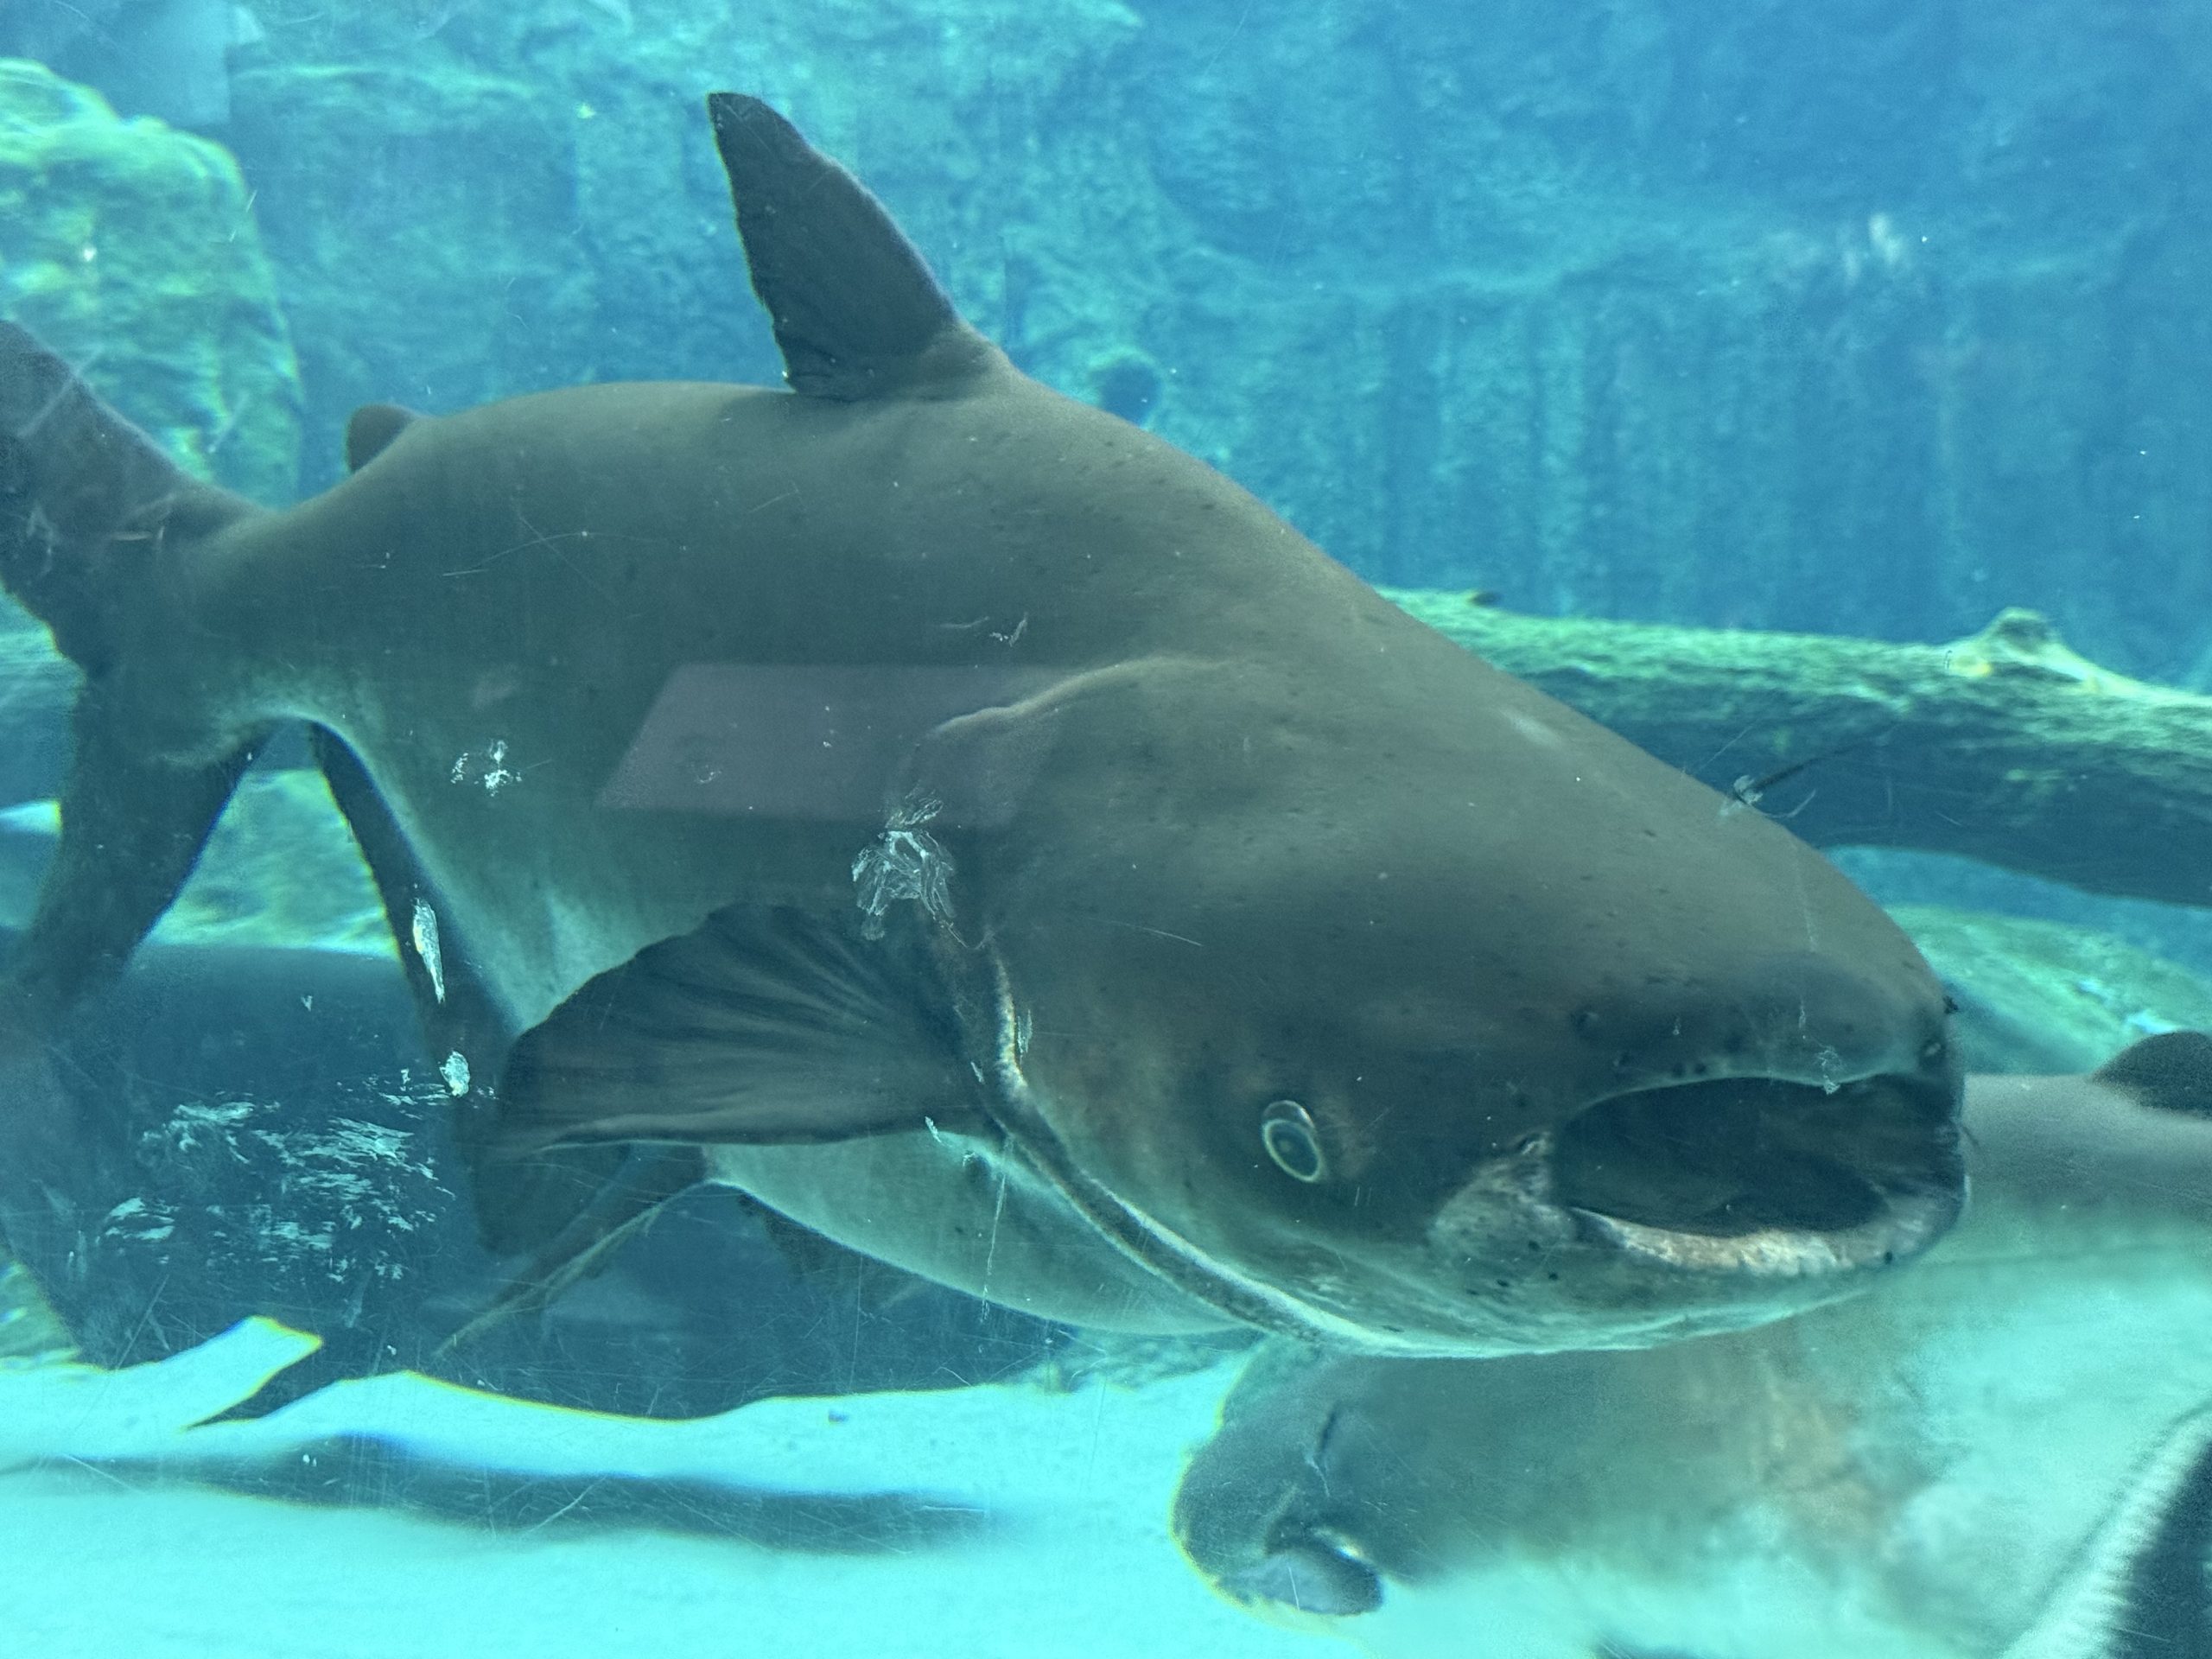
巨鲶历史上分布在湄公河中下游流域,研究团队并没有沿河等距撒点。他们先看历史捕获记录,又利用以往保育项目中的地方生态知识,并访谈有经验的渔民。研究者把这些信息同湄公河委员会的水文图配合,优先找曾捕到该物种、而且在旱季可能成为鱼类避难处的深潭。
采样安排在2014年4月和5月,正值旱季末、河流流量相对低的时候。六个地点横跨柬埔寨、老挝和泰国,分别在每个深潭的下游唇部和最深点取水。这样做没有让地方知识变成物种出现的证据,而是把有限的船上取样机会放在过去有记录、又适合深水鱼停留的河段。
每个取样点都保留接近河底、混合水柱和表层三个层位,并用测深仪记录最大水深。巨鲶被认为主要在近底至中层活动,分层取水让实验室结果能回到深潭中的具体水层阅读。
引物与探针怎样锁定巨鲶DNA
水样里的DNA往往短而杂。论文先设计针对巨鲶细胞色素b片段的引物和探针,再做两轮验证。设计阶段把GenBank中可获得的巨鲶序列,以及Pangasiidae科28种中的16种序列排在一起;随后以ecoPCR在2012年12月发布的EMBL-Bank第114版中检查可能的非目标扩增。结果显示,单用这套引物时,几种美国鱼类理论上可能出现错配扩增;加上探针后,作者报告只有湄公河巨鲶会被扩增。
实验室验证使用来自泰国圈养巨鲶的10份DNA样本。研究者把已知DNA从每微升10−1纳克逐步稀释到10−10纳克,以12个重复进行实时PCR,测得引物和探针组合的检出限为每微升5×10⁻⁸纳克。反应扩增的是83个碱基的片段,这个长度适合环境中较易降解的DNA。每次反应先在50摄氏度进行5分钟、95摄氏度进行10分钟,再完成50轮95摄氏度30秒和58.8摄氏度1分钟。这里验证的是检测试剂能否认出目标序列,并不表示河水中DNA浓度已经能换算成河里的鱼数。
随后才做现场条件验证。研究人员在泰国廊开府Srichiangmai渔业研究中心的圈养池塘取水,池中巨鲶密度从低到高都有。每次从岸边过滤10升近表层水,使用1微米滤膜胶囊、无菌管路和便携蠕动泵;过滤后向胶囊加入125毫升乙醇,在4摄氏度冷藏数日并在四天后送到实验室。表1中低、中、高密度池的列项均为12个PCR重复全部阳性,物种缺席的阴性对照为0/12。
这个验证并非只把一支水样放进机器。滤膜样在独立处理水样的房间中提取,研究者同时做两份模拟提取以监测污染;扩增时也设置12个重复的PCR阴性对照。池塘检出成功说明巨鲶能向水中释放足够的DNA让该流程找到,且检测不随表中三档圈养密度而失败。论文随后特别提醒,养殖池的鱼密度通常高于自然河流,不能把这组全部阳性的结果直接移植到野外深潭。
污染控制贯穿了池塘与野外样本的判读。处理水样的房间采用正压、紫外处理和频繁换气;工作人员进房前更换专用防护服、口罩、鞋套和两层手套。每批提取会有两份模拟提取,PCR还设12个重复的阴性对照。野外A5出现扩增时,提取和PCR阴性对照均未扩增,因此论文将该信号作为目标DNA检出的结果,而非实验室交叉污染的迹象。
这些对照同时给出一个判读次序。先看阴性对照是否保持阴性,再看同一水样的重复中是否出现目标扩增,最后把结果放回取样层位和地点。池塘实验中每个表列样本的12次重复都阳性;野外A5只有1次阳性。两种结果的差别正是论文把自然河流调查称为有限验证、并要求继续重复采样的原因。
六处深潭,36份分层水样
野外取水从船上进行。每处深潭有下游唇部和最深点两个取样点,每点各取近底、水柱和表层三类水样,因此六处深潭共得到36份待分析水样。近底样本在底质上方一米取得;水柱样本避开水面下和底质上方各一米后,把余下深度分为十段,每段取一升。每个层位过滤10升水,每个取样点合计30升,每个深潭合计60升。取样轮次前,浸没取水器和水桶用10%含氯漂白液消毒,每次过滤使用新的无菌管路。
野外胶囊装入保存缓冲液,先放入保温箱冰上保存,再在4摄氏度冷藏后送检。实验室提取、12个重复的实时PCR和阴性对照沿用现场验证的流程。这样,一次扩增信号能追溯到哪个深潭、哪一个取样点和哪一层水。
取样量也不是随意选择的。论文指出,许多eDNA研究的单份体积低于2升,而在大型、流量变化明显的河流中,稀有鱼DNA可能被快速稀释。该研究把每个层位提高到10升过滤,并在同一深潭保留六个分层样本。作者没有把60升当成已经优化的固定标准,反而提出需要在不同鱼密度和河流流量情景下继续测试这种策略的效率。
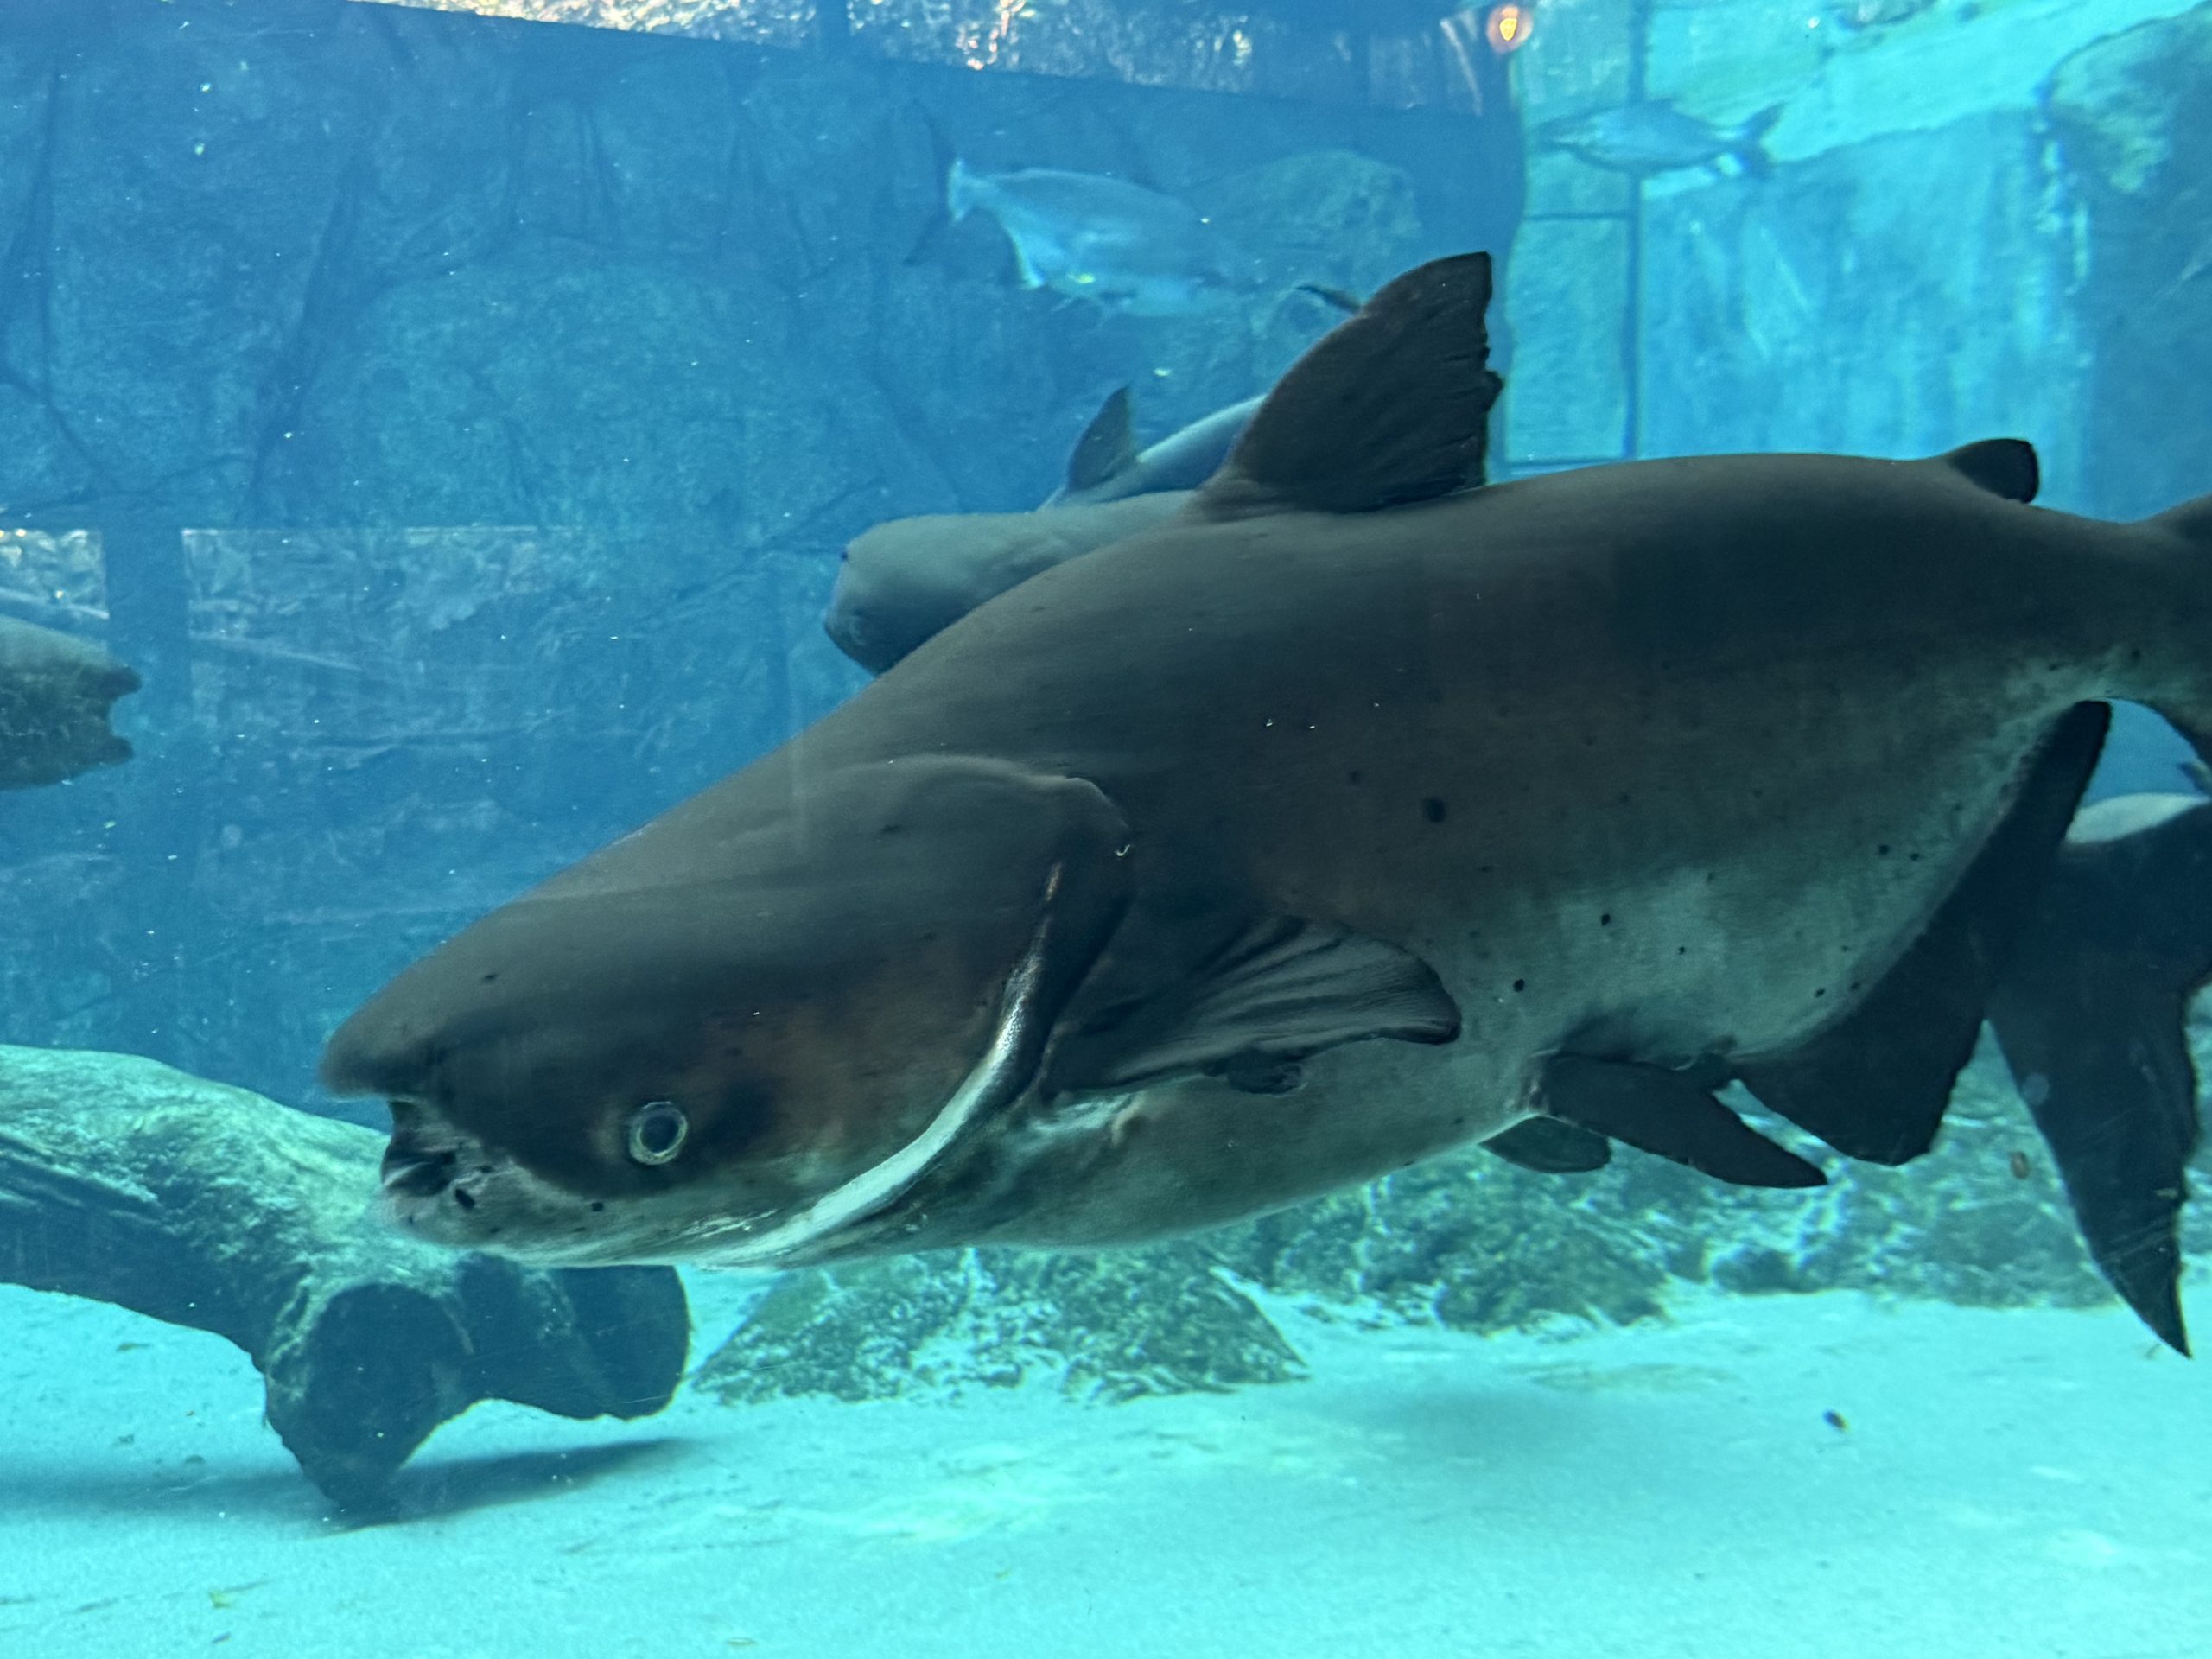
36份野外样本中,只有一份出现巨鲶DNA扩增。它是A点的A5水柱样,12个PCR重复中只有1个阳性;提取和PCR阴性对照没有扩增。论文将这个地点写作接近泰国北部与老挝边境的已知产卵地。阳性来自混合水柱而非近底水,这一观察和鱼在水中的即时位置并不能简单画上等号;作者提出水柱可能混合了不同深度的水,并指出复杂河床中的水流和上升流会影响DNA的空间分布。
这里的12次重复发生在实验室里,针对同一份水样提取的DNA;它们不是12次独立出船采水,也不能将1/12理解为深潭里十二条鱼中的一条。现场的独立信息仍来自六个地点、每处两个取样点,以及分别保留的三个水层。
一份阳性水样说明了什么
环境DNA来自生物留在环境里的遗传物质。对这项研究而言,阳性说明采到的那份水中有可被这套引物和探针识别的巨鲶DNA。它支持研究团队把这种方法用于大型热带河流中极稀有鱼类的初步搜寻,也与该点靠近已知产卵地的选址相呼应。论文没有把这一次扩增写成当地有多少尾鱼,没有用它确认繁殖成功,也没有据此扩展成泰国境内的当前分布范围。
传统取样为什么难,也能从深潭尺度看出来。论文提到湄公河一些深潭可深达70米,电捕或围网在许多地点难以按研究需要展开;声呐可以提供生物量信息,却通常不能给出物种鉴定。eDNA的优势就在于不必把鱼直接带到船边,不过它把难题转移到更精确的选点、取水层位和实验室污染控制上。
河流中的DNA可能来自采样点,也可能来自上游其他河段。它能在多远的下游水体中保持可检测状态,会受流速、流量、河道形态、温度、紫外线和微生物分解等因素影响。论文指出,在湄公河这样的大型河流中,这个过程当时没有可直接套用的研究数据。水柱阳性因此是一个需要结合取样设计阅读的地点信号,不是给河道画出一枚精确的鱼类坐标。
35份未检出样本留下的工作
其余35份样本未检出,并不自动表示相应深潭没有巨鲶。作者把检出拆成连续的条件:鱼在采样点或上游近期出现,释放的DNA数量足够,DNA在水中被采到,最后提取和PCR能够识别它。任何一步未发生,都可能得到阴性结果。对于分散而稀有的物种,这种“假阴性”尤其需要在设计阶段考虑。
研究者建议后续调查在短时间内从同一地点采集多份样本,再以地点占据率框架处理未检出。这个建议来自本次只有一个野外阳性的结果,也来自池塘和自然河流之间的差别:池塘验证证明流程能工作,却没有测出野外巨鲶的DNA释放率、自然密度或不同流量下的检出概率。要提高野外检出的机会,论文认为需要评估取样量、取样策略、鱼密度和河流流量之间的关系。
作者还把检出概率放在实际河流过程里讨论。DNA从鱼体进入水后,浓度会随释放量、在水中的降解、垂直和横向混合以及沿河输送而改变;采到的体积和过滤策略也会影响结果。论文没有给巨鲶在湄公河中的DNA释放率,因此未来设计不能从这一次A5扩增倒推每升水应有多少DNA,或规定所有深潭只采一个水层。
论文建议把这种物种专一的eDNA检测用于基线调查,或用来筛选需要更严格取样的地点。对巨鲶而言,深潭、地方生态知识和分层采水提供了现场框架,重复PCR和阴性对照提供了实验判读框架。2014年的结果停在六处深潭、36份样本和一次水柱阳性这一尺度上,后续调查需要用更密集的重复取样来检验地点占据与未检出。