泰国记录中的斑飞蜥
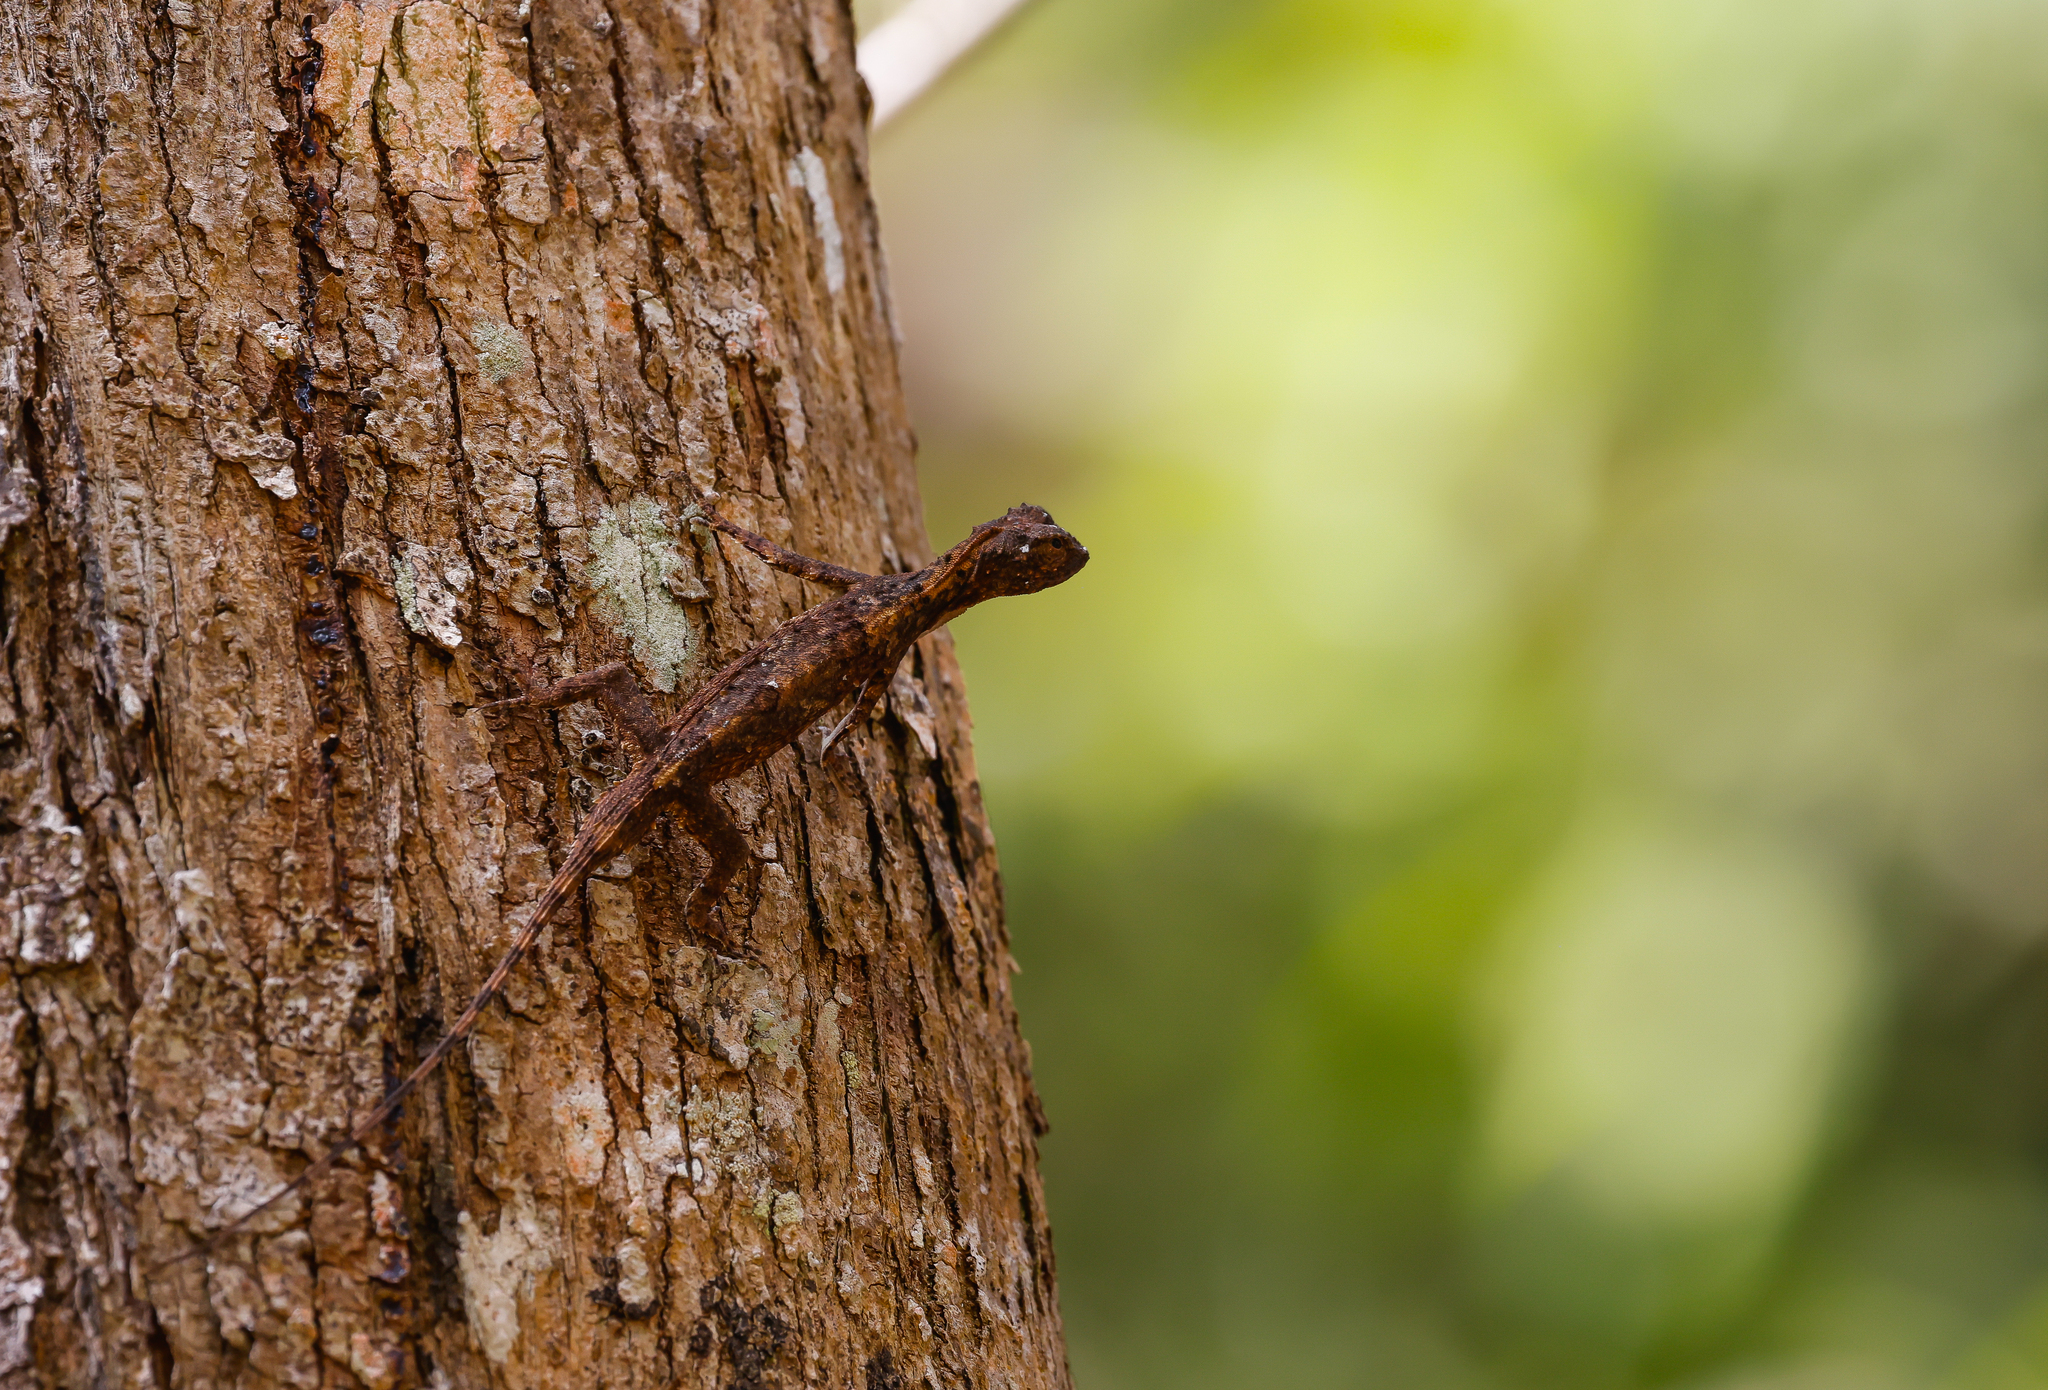
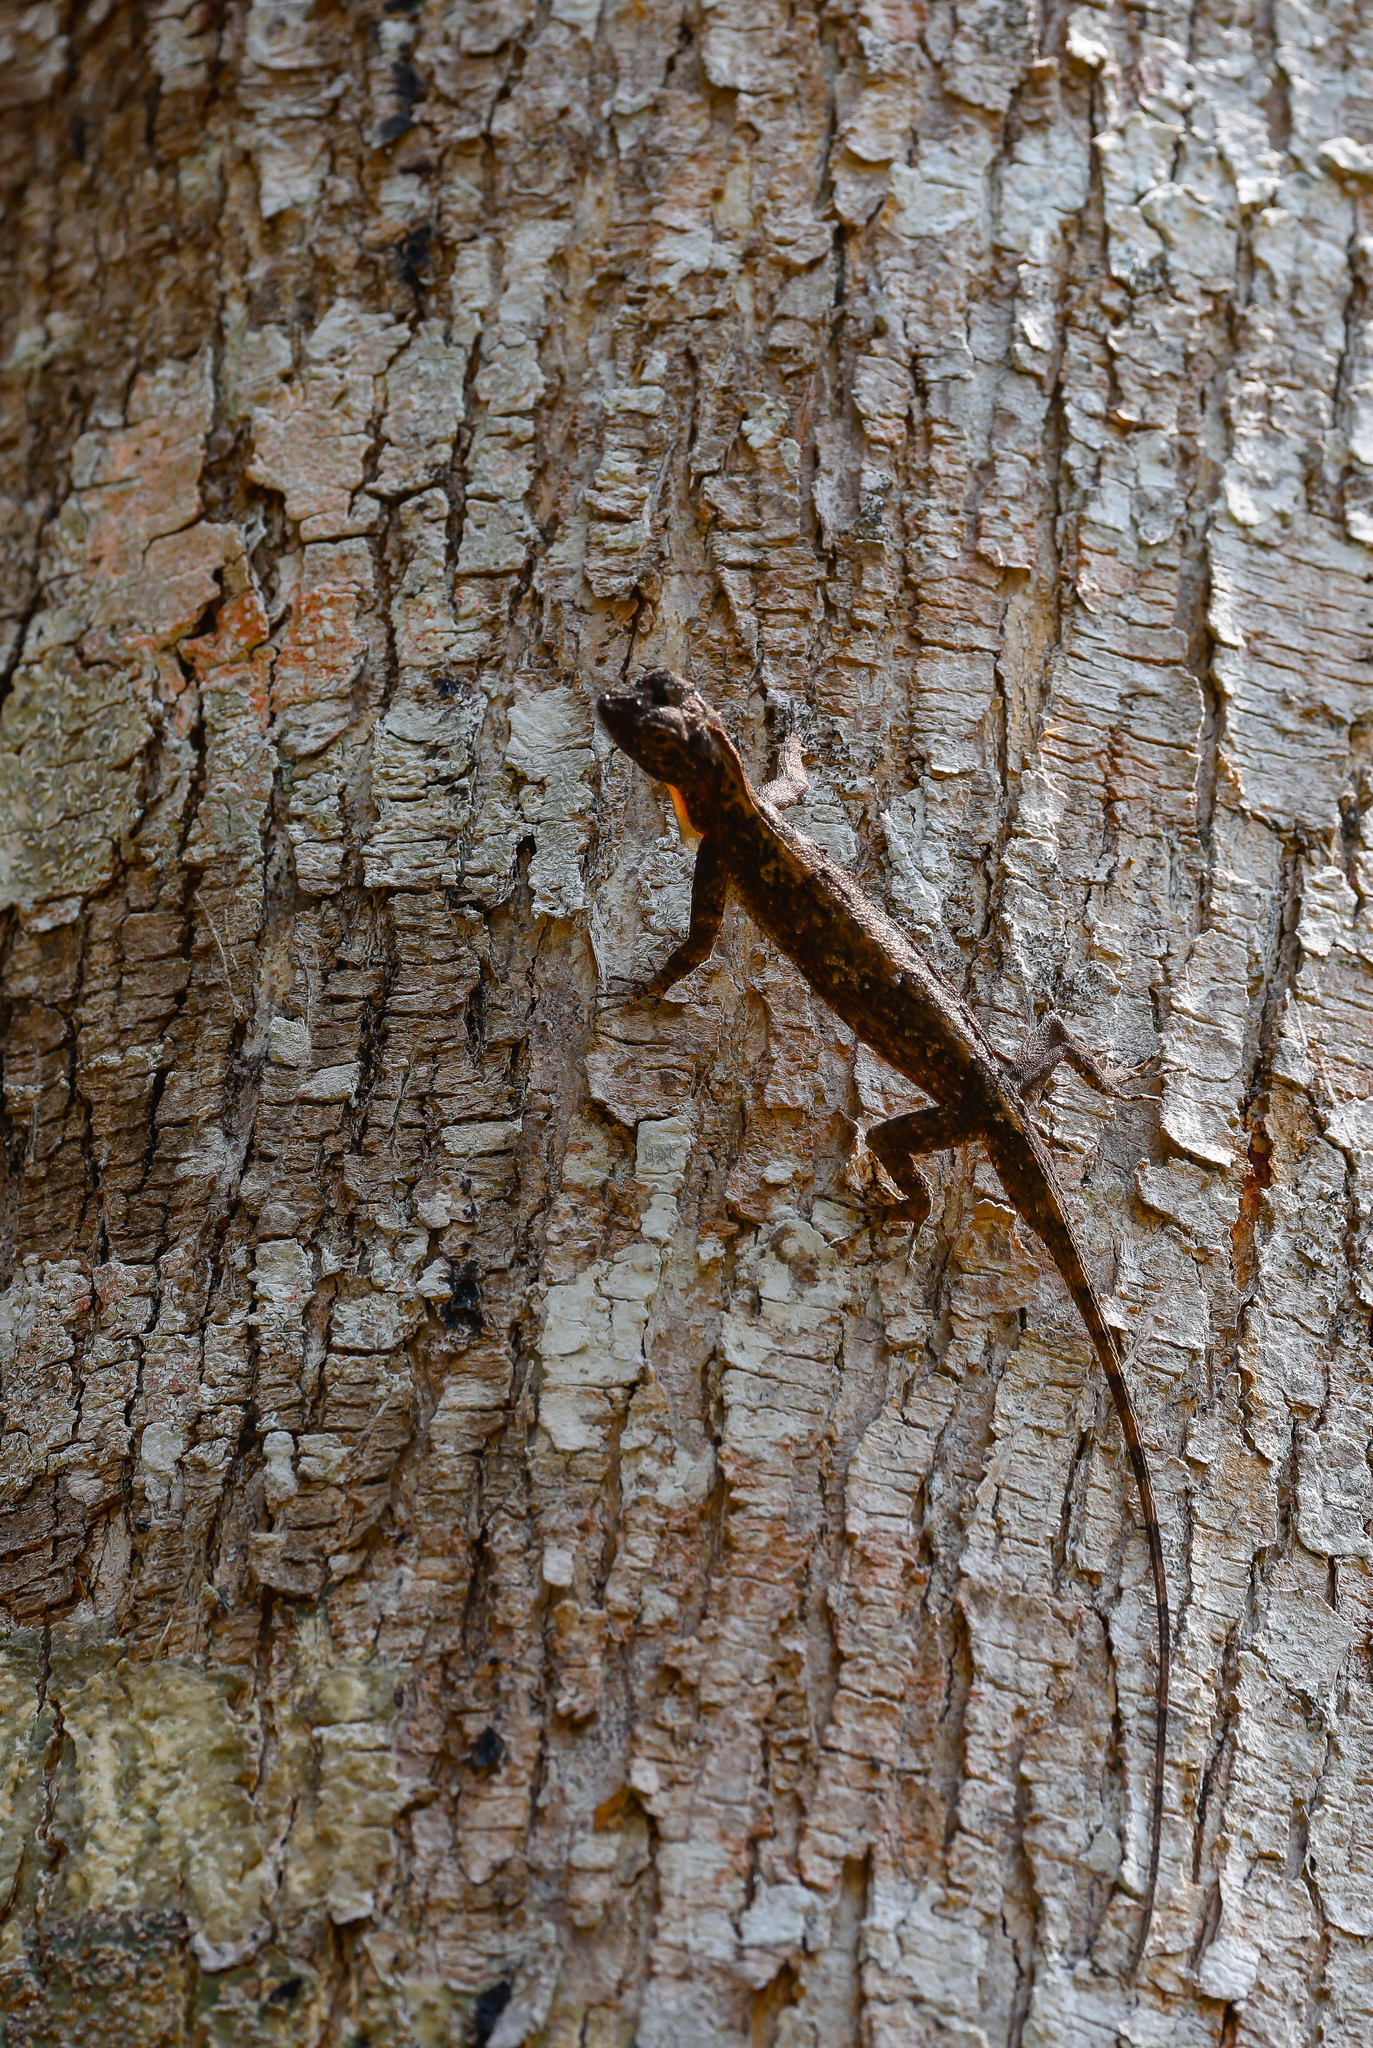
斑飞蜥 Draco maculatus 在 GBIF 有一条泰国发生记录:2026 年 2 月 23 日,呵叻府,北纬 14.423778、东经 101.385574;记录来源是 iNaturalist research-grade observations。物种名、日期、坐标和记录类型同时出现,使它成为一条可追溯的现场观察线索。
这条记录不是全府调查,也不是种群普查。树栖动物能否进入观察者视野,会受枝叶高度、光线和路线影响;一次人类观察只能把一个个体放回它当时被记录的地点与日期。它不提供稳定可见性、季节规律或数量,却足以让讨论从抽象的“泰国有飞蜥”落到一条具体物种记录。
翼膜不是从四肢拉出的一张“皮”
飞蜥滑翔面的关键是翼膜,也常用 patagium 这个词。开放研究把 Draco 属的翼型描述为由翼状膜形成、由拉长的胸肋支撑;其中有五到七根胸肋显著延长,专门的髂肋肌和肋间肌参与把它们展开。把这层结构想成身体两侧可折叠的扇骨,会比把它想成松松挂在四肢之间的一块布更接近实际:肋骨给出横向支撑,翼膜在展开后才成为承受气流的面。
这也解释了它为什么属于滑翔而不是主动拍翼飞行。研究所说的翼型来自展开的翼膜和身体姿势,起跳后仍会向前、向下运动;它没有鸟翼或蝙蝠翼那种持续拍动来反复补充能量。在印度研究记录的滑翔中,轨迹多在下降,临近落点才变得更平;部分较长滑翔的末段会转为水平或向上。所谓“飞得远”不该被理解为悬停,也不该理解为可以从地面平直升到树梢。
胸肋能把翼膜开合,却未必能单独完成所有精细控制。研究指出,最前面的延长肋只接有两块肌肉,能做的方向有限,主要是把翼膜向前展开或向后收拢。若要在空中改变翼型前缘的形状、调整朝向并把轨迹对准一根树干,只靠这组躯干肌肉似乎不够灵活。问题于是变成:在翼膜已经张开以后,谁来帮它细调这张“翼”?
前肢接到前缘,才形成可控制的复合翼
2017 年对印度西南部 Dussumier 飞蜥(Draco dussumieri)的一项连续照片与视频研究给出的答案,比旧画里“前肢一直伸在前面”的姿势复杂得多。研究者发现,飞蜥在空中不会始终把前肢空着伸向前方;前肢会接到翼膜的前缘。原本分别属于前肢和躯干两侧的部分,只在这段滑翔期间临时连成一个整体,作者把它称为复合翼。这样一来,前肢不只是起跳后闲着的两根杆,而成了翼型最前缘的一部分。
起跳的顺序也很具体。蜥蜴先在树干上把身体转到接近水平,跳出去后短暂头朝下下降,再把腹面朝向地面。伸开的前肢向后上方够去,前方的翼膜支撑肋已经张开;当手臂与翼膜前缘接近平行,收拢的手放到前缘外侧的背面。两侧的手并非总在同一时刻放好,研究记录到这种先后差可以带来轻微偏转。翼膜展开后,背部会拱起,原本平的面形成弯度;前肢则把前缘拉成较直、较厚的一条边,和较薄的后缘构成不同的翼型轮廓。
这一套连接还有细节可看。作者讨论到,前肢位于前缘下方的一侧,手压在翼膜背面的一侧,像把翼膜前缘夹在中间;手腕向尺侧偏转后,爪能在前两对延长肋上方的改良鳞片区域施力。第三、四指长度接近,较短的第二、五指也彼此接近,这种长度组合被作者解释为有助于抓住翼膜表面。它不是“用手举着一张伞”,而是把能产生升力的面和能调整它的前肢暂时锁成一件结构。
翼型的前缘和后缘之所以值得分开说,是因为它们不是同一种边。前肢接上以后,较直、较厚的前缘由手臂和翼膜边缘共同构成;后缘仍较薄。背部拱起会让展开的翼膜形成弯度,改变原本更接近平面的形状。作者据空气动力学的一般理论讨论,这种弯度,加上厚前缘和薄后缘的组合,可能比平翼面产生更大的升力;短而宽的 Draco 翼型究竟能增加多少升力,仍有待实验测量。
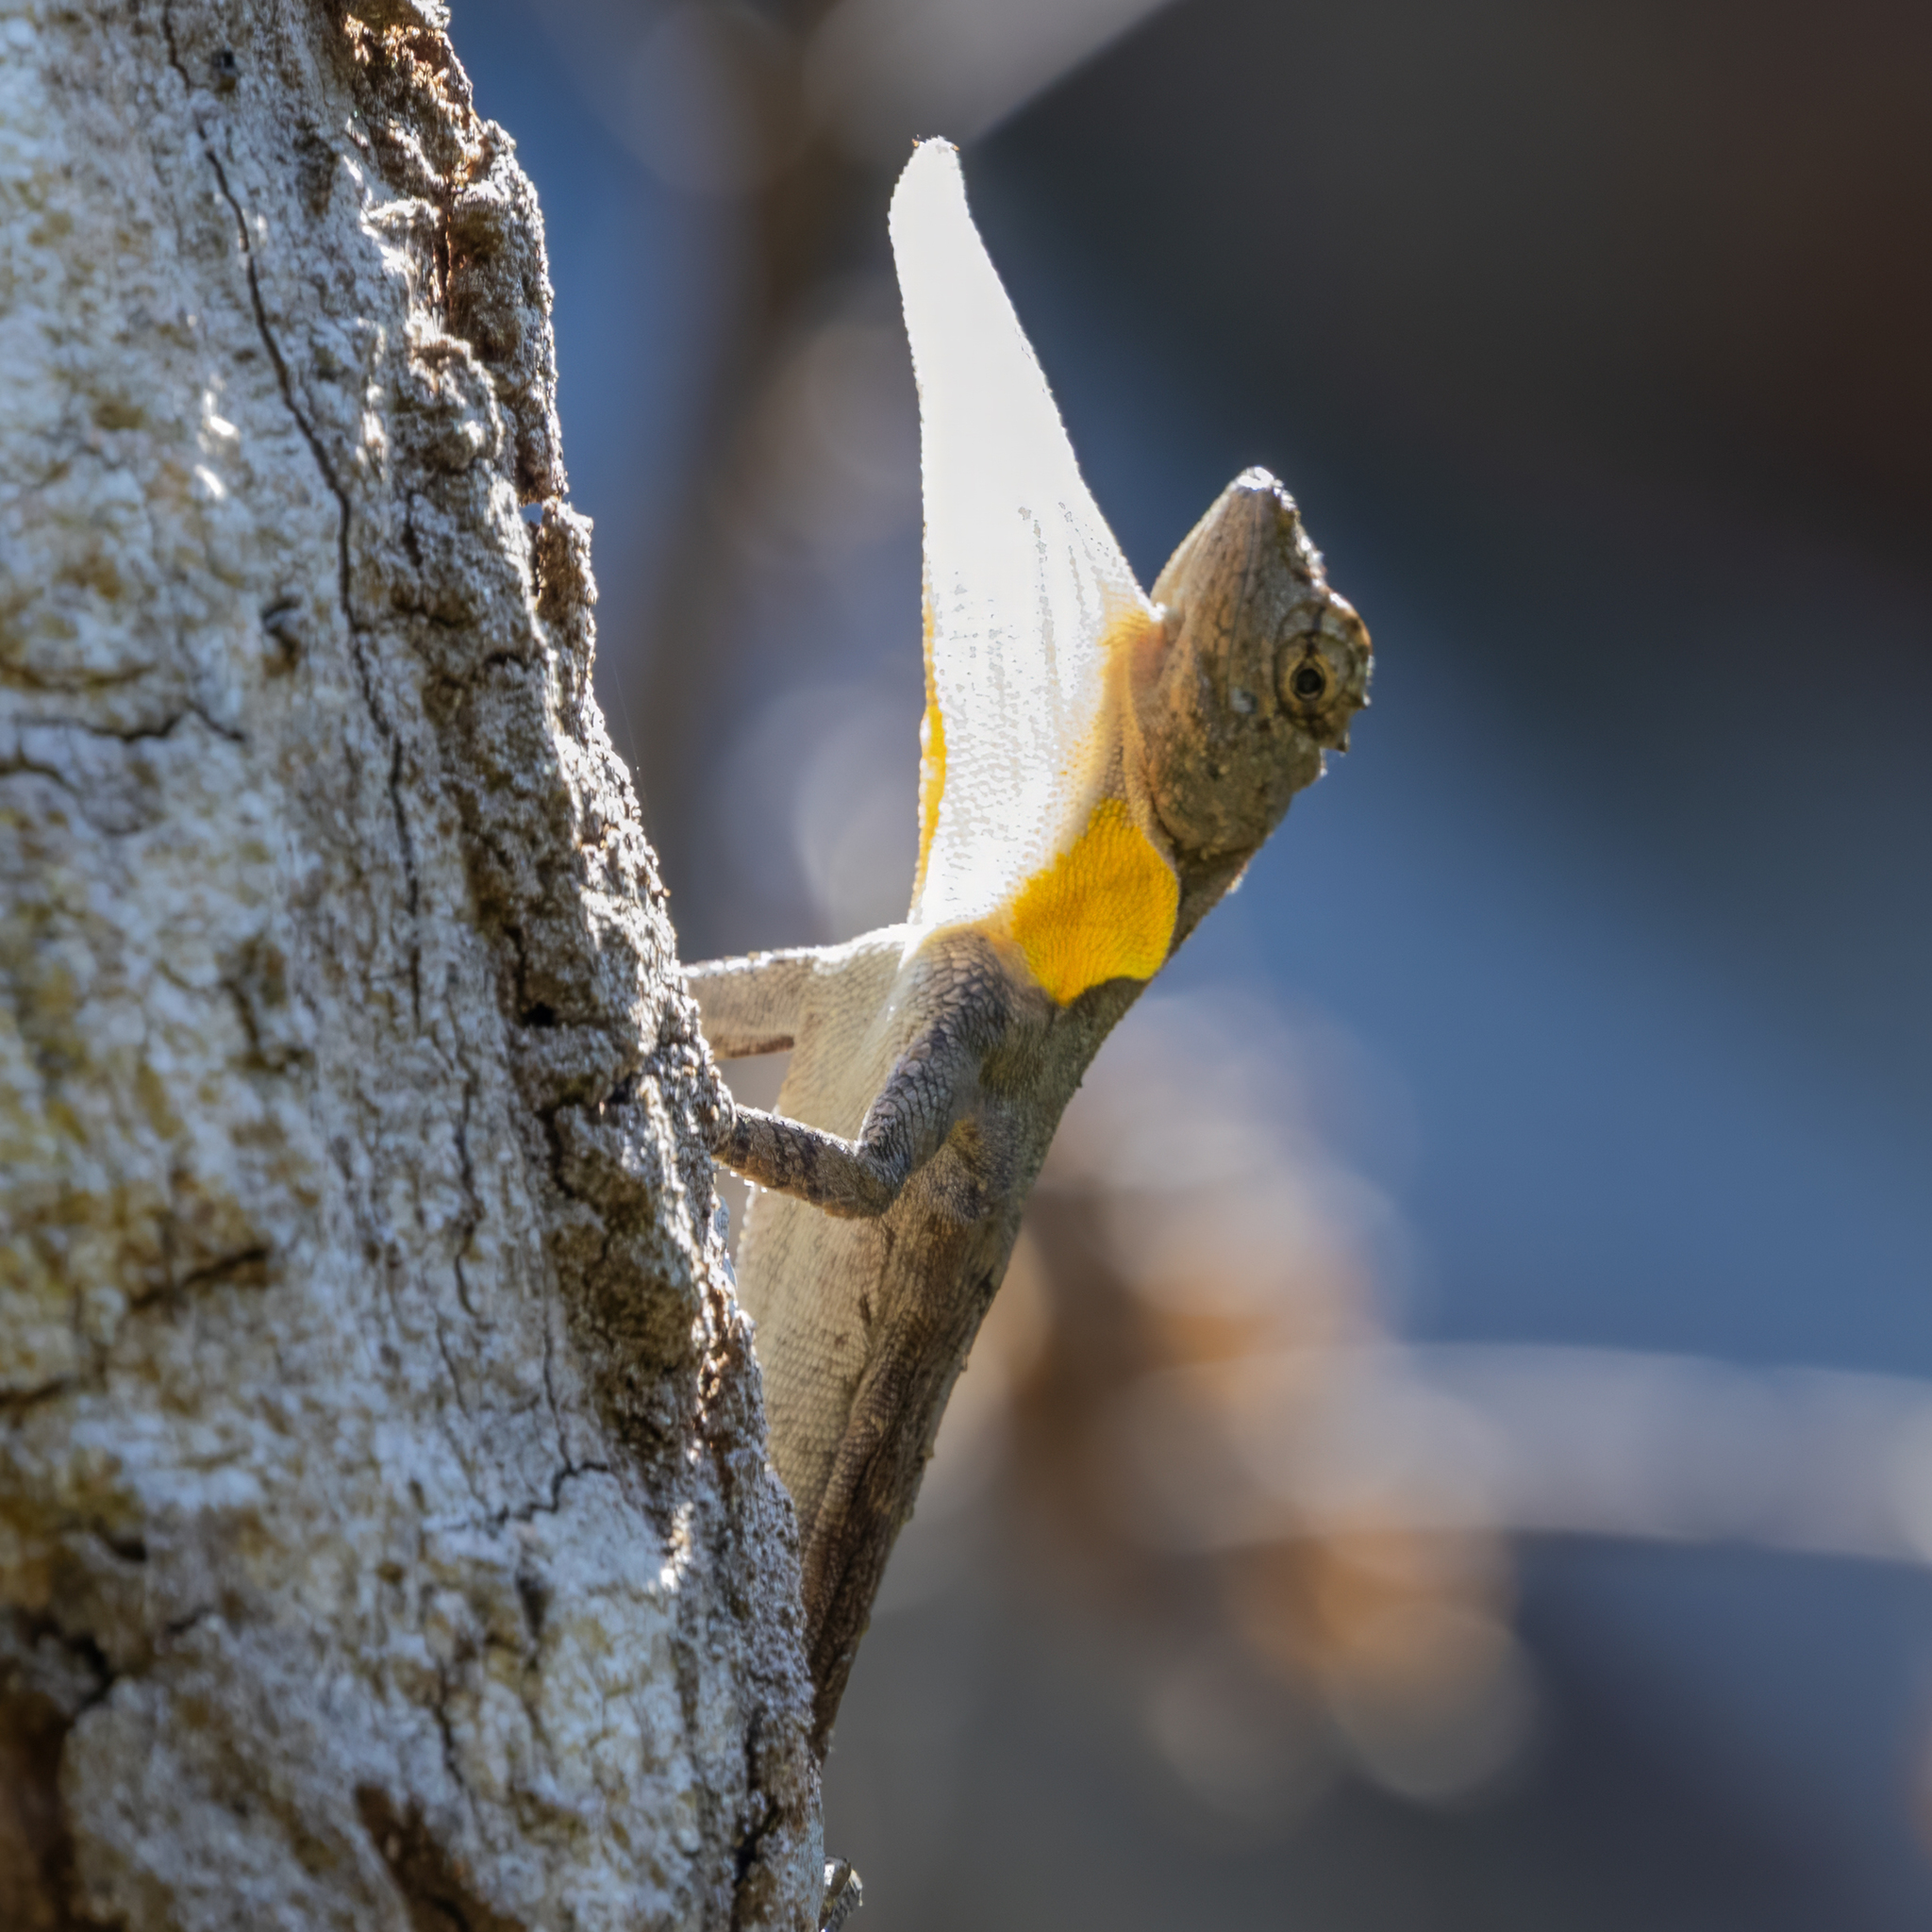
照片中向前伸出的黄白色垂片位于喉下。滑翔翼膜则从躯干两侧向外展开;分清它们在身体上的位置,才不会把伸出喉部结构的树干姿态误当成滑翔姿态。
数字要连同物种、地点和测量方法一起读
这里需要把两个物种分开:泰国坐标记录的是斑飞蜥 Draco maculatus;连续动作研究观察的则是 Dussumier 飞蜥 Draco dussumieri。后者的地点在印度西南部 Karnataka 的 Agumbe 与 Hebri 附近槟榔和椰子种植园,观察发生在 2015 年 3 月以及 2017 年 3 至 4 月的十四个非连续日。约五百次滑翔至少涉及二十只雄体和六只雌体。研究者为约一百五十段滑翔拍摄连拍照片,并以每秒六十帧的视频逐帧分析复合翼形成与着陆;距离、速度和时间因此属于印度的 D. dussumieri,不是泰国斑飞蜥的现场测量。
“至少二十只雄体和六只雌体”不是给每一只贴上编号后的完整清点。研究者把三个相互分开的观察地点中、同一时刻能看到的最大个体数相加,得到这个保守的最小总数;连续出现的同一只个体不必然会被算成新的个体。连拍相机在 2015 年每秒拍 5.5 帧,2017 年为每秒 6.5 帧,视频则为每秒 60 帧。正因为动作被拆成连续画面,手何时接上翼膜、何时脱开才不是凭一张静态照片猜出来的姿势。
在这些观察中,最短一次水平滑翔约为 2.2 米,最长约为 26 米。两个被详细记录的滑翔,水平距离分别为 8 米和 12 米,最高速度约为每秒 6.8 米,水平方向约为每秒 5.8 米。这些数字不该被剪成“飞蜥时速排行榜”:26 米是观察到的最长一段,不是所有个体的能力上限;6.8 米每秒来自两段有详细记录的滑翔,也不是整个属的统一速度。它们真正说明的是,树间滑翔的长度差异很大,起点、落点、姿势和空中调整都会留下痕迹。
研究把一次滑翔分成起跳、加速、滑翔和着陆四段。离开树干时,蜥蜴大约以每秒 2 米的前进速度起步;随后在向下运动中加速。复合翼完成后,轨迹变得更平。靠近落点时,手和翼膜前缘会抬到身体水平面以上,翼型向上转,轨迹随之变平,甚至可能出现向上的弯折。这种“抬头”不是重新获得动力飞行,而是在已有前进速度下重调翼型和运动方向,以便把速度消掉一些、把身体对准树干。
着陆不是把翼膜收起来那么简单
从远处看,飞蜥落到树上像一个很短的结尾;逐帧看,最后一段恰好把它为什么仍要保留可自由使用的前肢说得最清楚。翼型上仰后,前肢在接近落点前仍和翼膜相连;到需要抓住表面时,手才抬离翼膜,前肢转向树干。接着翼膜开始收回身体两侧,前肢先接触,后肢随后跟上。长距离滑翔的末端,轨迹有时会接近平或略向上,四肢也可能几乎同时触到表面。
从手指离开翼膜到前肢朝前伸出,研究测得约在三十分之一秒内完成。这个时间很短,普通单张照片很难分清个体正在滑翔、准备抓树还是已经着陆。复合翼因而是临时结构:前肢在空中参与控制,接触树皮前迅速脱开,恢复攀爬和抓握。研究者把这看作一种兼顾方式,前肢在不滑翔时仍保留完整的攀爬、奔跑功能。
两只相互攻击的雄性曾张开翼膜,却没有把前肢接到翼膜上,随后沿树干不受控制地下落。这个观察本身不能证明“没接手就一定坠落”,但与正常着陆序列并列,说明前肢连接值得被视为操控的一部分。因果关系仍需进一步实验:若阻止这种连接,个体是否还能完成定向滑翔,原研究并没有直接检验。
属内比较与泰国斑飞蜥
这项研究并非只看了一种活体。作者还检查了十八种 Draco 的馆藏标本,以及十二个其他亚洲树栖鬣蜥属的二十一种标本,用来比较翼膜、前肢和手部特征。讨论部分指出,Draco 属内的翼膜和前肢形态相对保守,延伸的前肢在各物种中都接近翼膜前缘外侧,因此复合翼很可能以类似方式形成。这给我们一个合理的解释框架:泰国斑飞蜥也属于同一类肋骨支撑、前肢参与前缘的飞蜥结构。
这里的“很可能”来自属内比较,而非泰国斑飞蜥的逐帧飞行影像。呵叻府的记录提供物种、地点和日期;馆藏比较提供属内结构的共同点;印度的连续影像提供起跳、前缘连接和着陆的动作细节。三者能共同解释飞蜥如何组织一次树间滑翔,不能替那条泰国记录补上滑翔距离、食物、繁殖时间、族群大小或固定活动树。
看一段真正展开翼膜的滑翔
BBC Earth的《地球脉动II》短片里,飞蜥先停在树干上,随后出现身体两侧翼膜充分展开的空中画面。约一分十五秒处,从腹面可以看见躯干两边的滑翔面和弯曲的长尾。把目光放在前肢、躯干和翼膜的相对位置上,比只盯着飞行距离更容易理解这套结构。短片介绍的是Draco属飞蜥,页面没有给出确切物种或泰国拍摄地点;它展示滑翔外观,精细的接翼和释放时序仍以印度研究的连续影像分析为依据。