先认学名和泰语名
GBIF 将 Glyphoglossus molossus Günther, 1869 作为接受名,置于小雨蛙科和 Glyphoglossus 属。这里用英文常名 Blunt-headed Balloon Frog 的描述性译名“钝头气球蛙”。泰国一篇2023年高校期刊研究把它写作 อึ่งปากขวด;这个名称能帮助在泰文资料中继续寻找,同样不应被说成唯一名称。
泰国关联不是只靠名称。GBIF 的泰国过滤记录中有佛丕府、乌隆他尼府和叻丕府的人类观察示例,均保留日期和地点。它们说明这一个学名在泰国有可追溯的观察线索,却不能拼成全国数量图:观察记录的多少还受到拍摄者活动范围影响。见到疑似个体时,拍下正面、侧面、趾端和周围地面,比只写“见到一只大蛙”更利于日后核对。
截短的吻端要和整套体形一起看
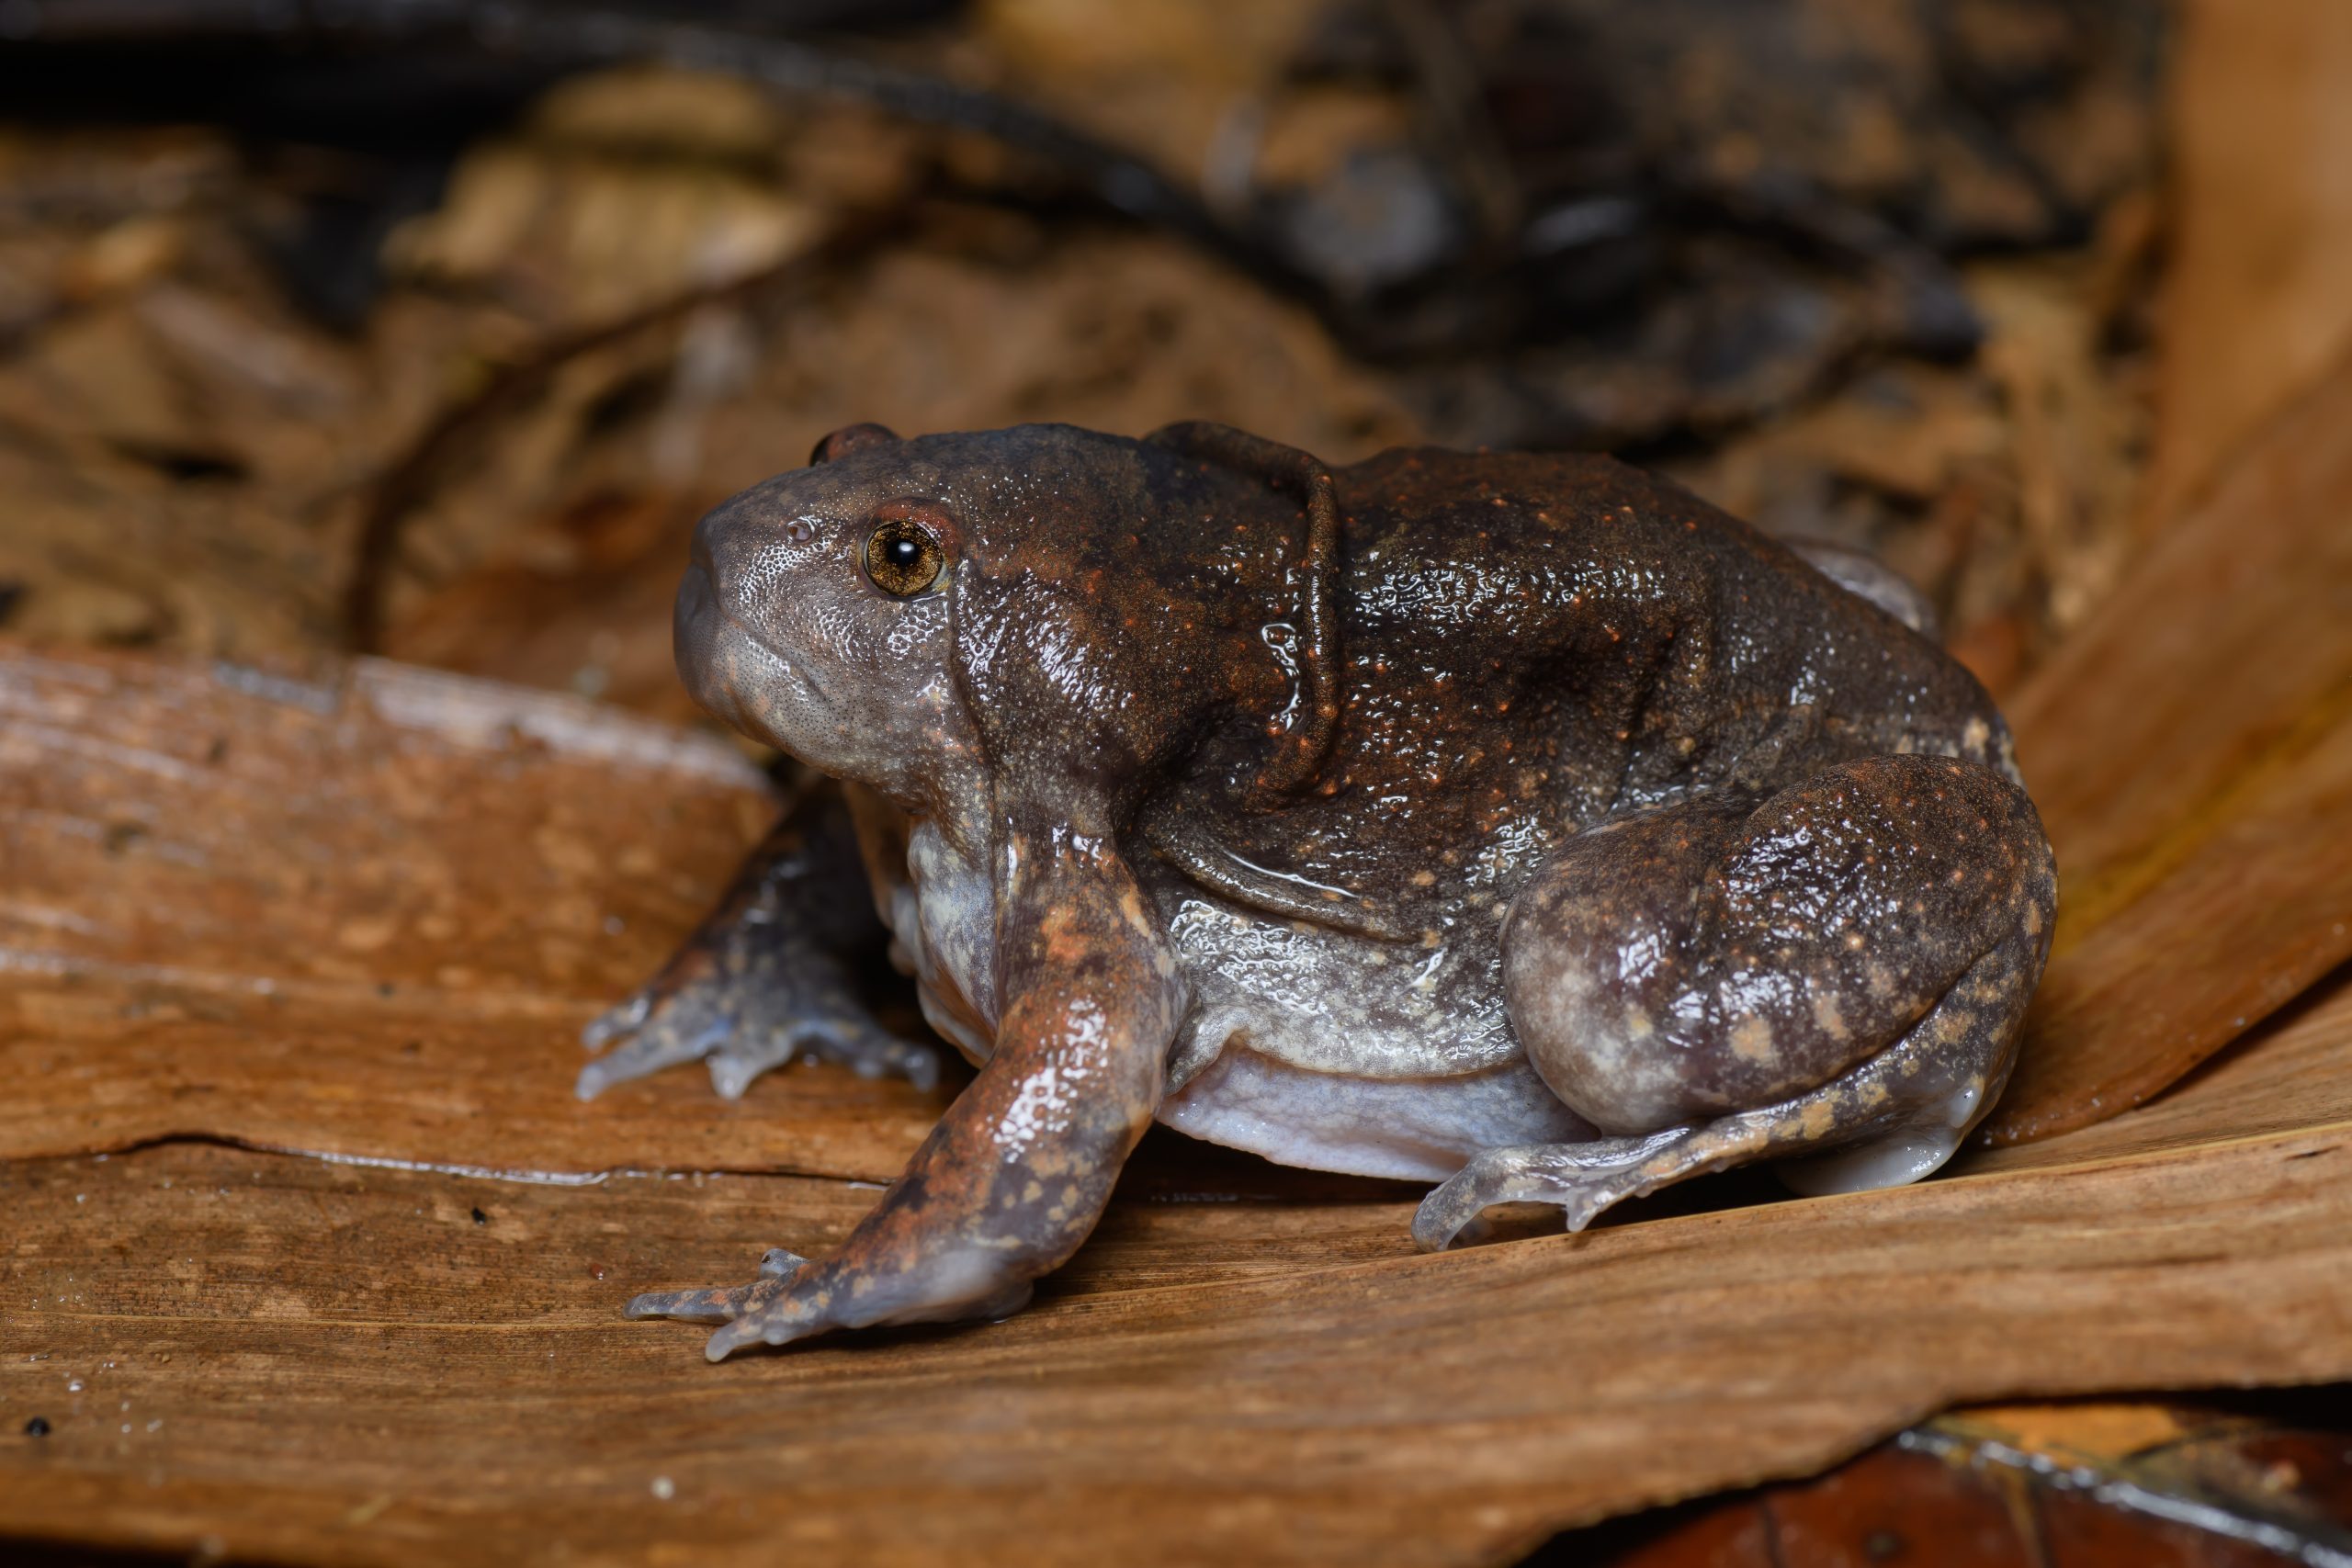
一项2020年老挝 Savannakhet 省的照片记录中描述了一只个体。作者把它描述为身体粗壮、头宽而短、吻端明显截断;耳膜不清楚,耳上褶明显,眼小,四肢短,趾间蹼发达,指趾端没有吸盘。这里最实用的不是背一个形容词,而是把几个部位连起来看:留意指趾末端是否呈盘状;短肢与趾蹼共同改变轮廓;耳上褶是头侧可留意的一条线。
同一老挝个体背皮厚且有腺体,腹面平滑;背部深灰,黄点不明显,腹面发白。这些颜色不是给泰国照片套模板的色卡,光线、湿度和个体状态都会影响画面。它们的价值在于提醒观察者,若只拍正上方,很容易漏掉腹面、皮肤纹理、耳上褶和趾端。老挝记录也有具体生境:小河岸边的河岸林,夹有季节性干燥龙脑香林残余和混交落叶林斑块。它说明该个体在那里被看见,不等于替泰国列出必需栖息地。
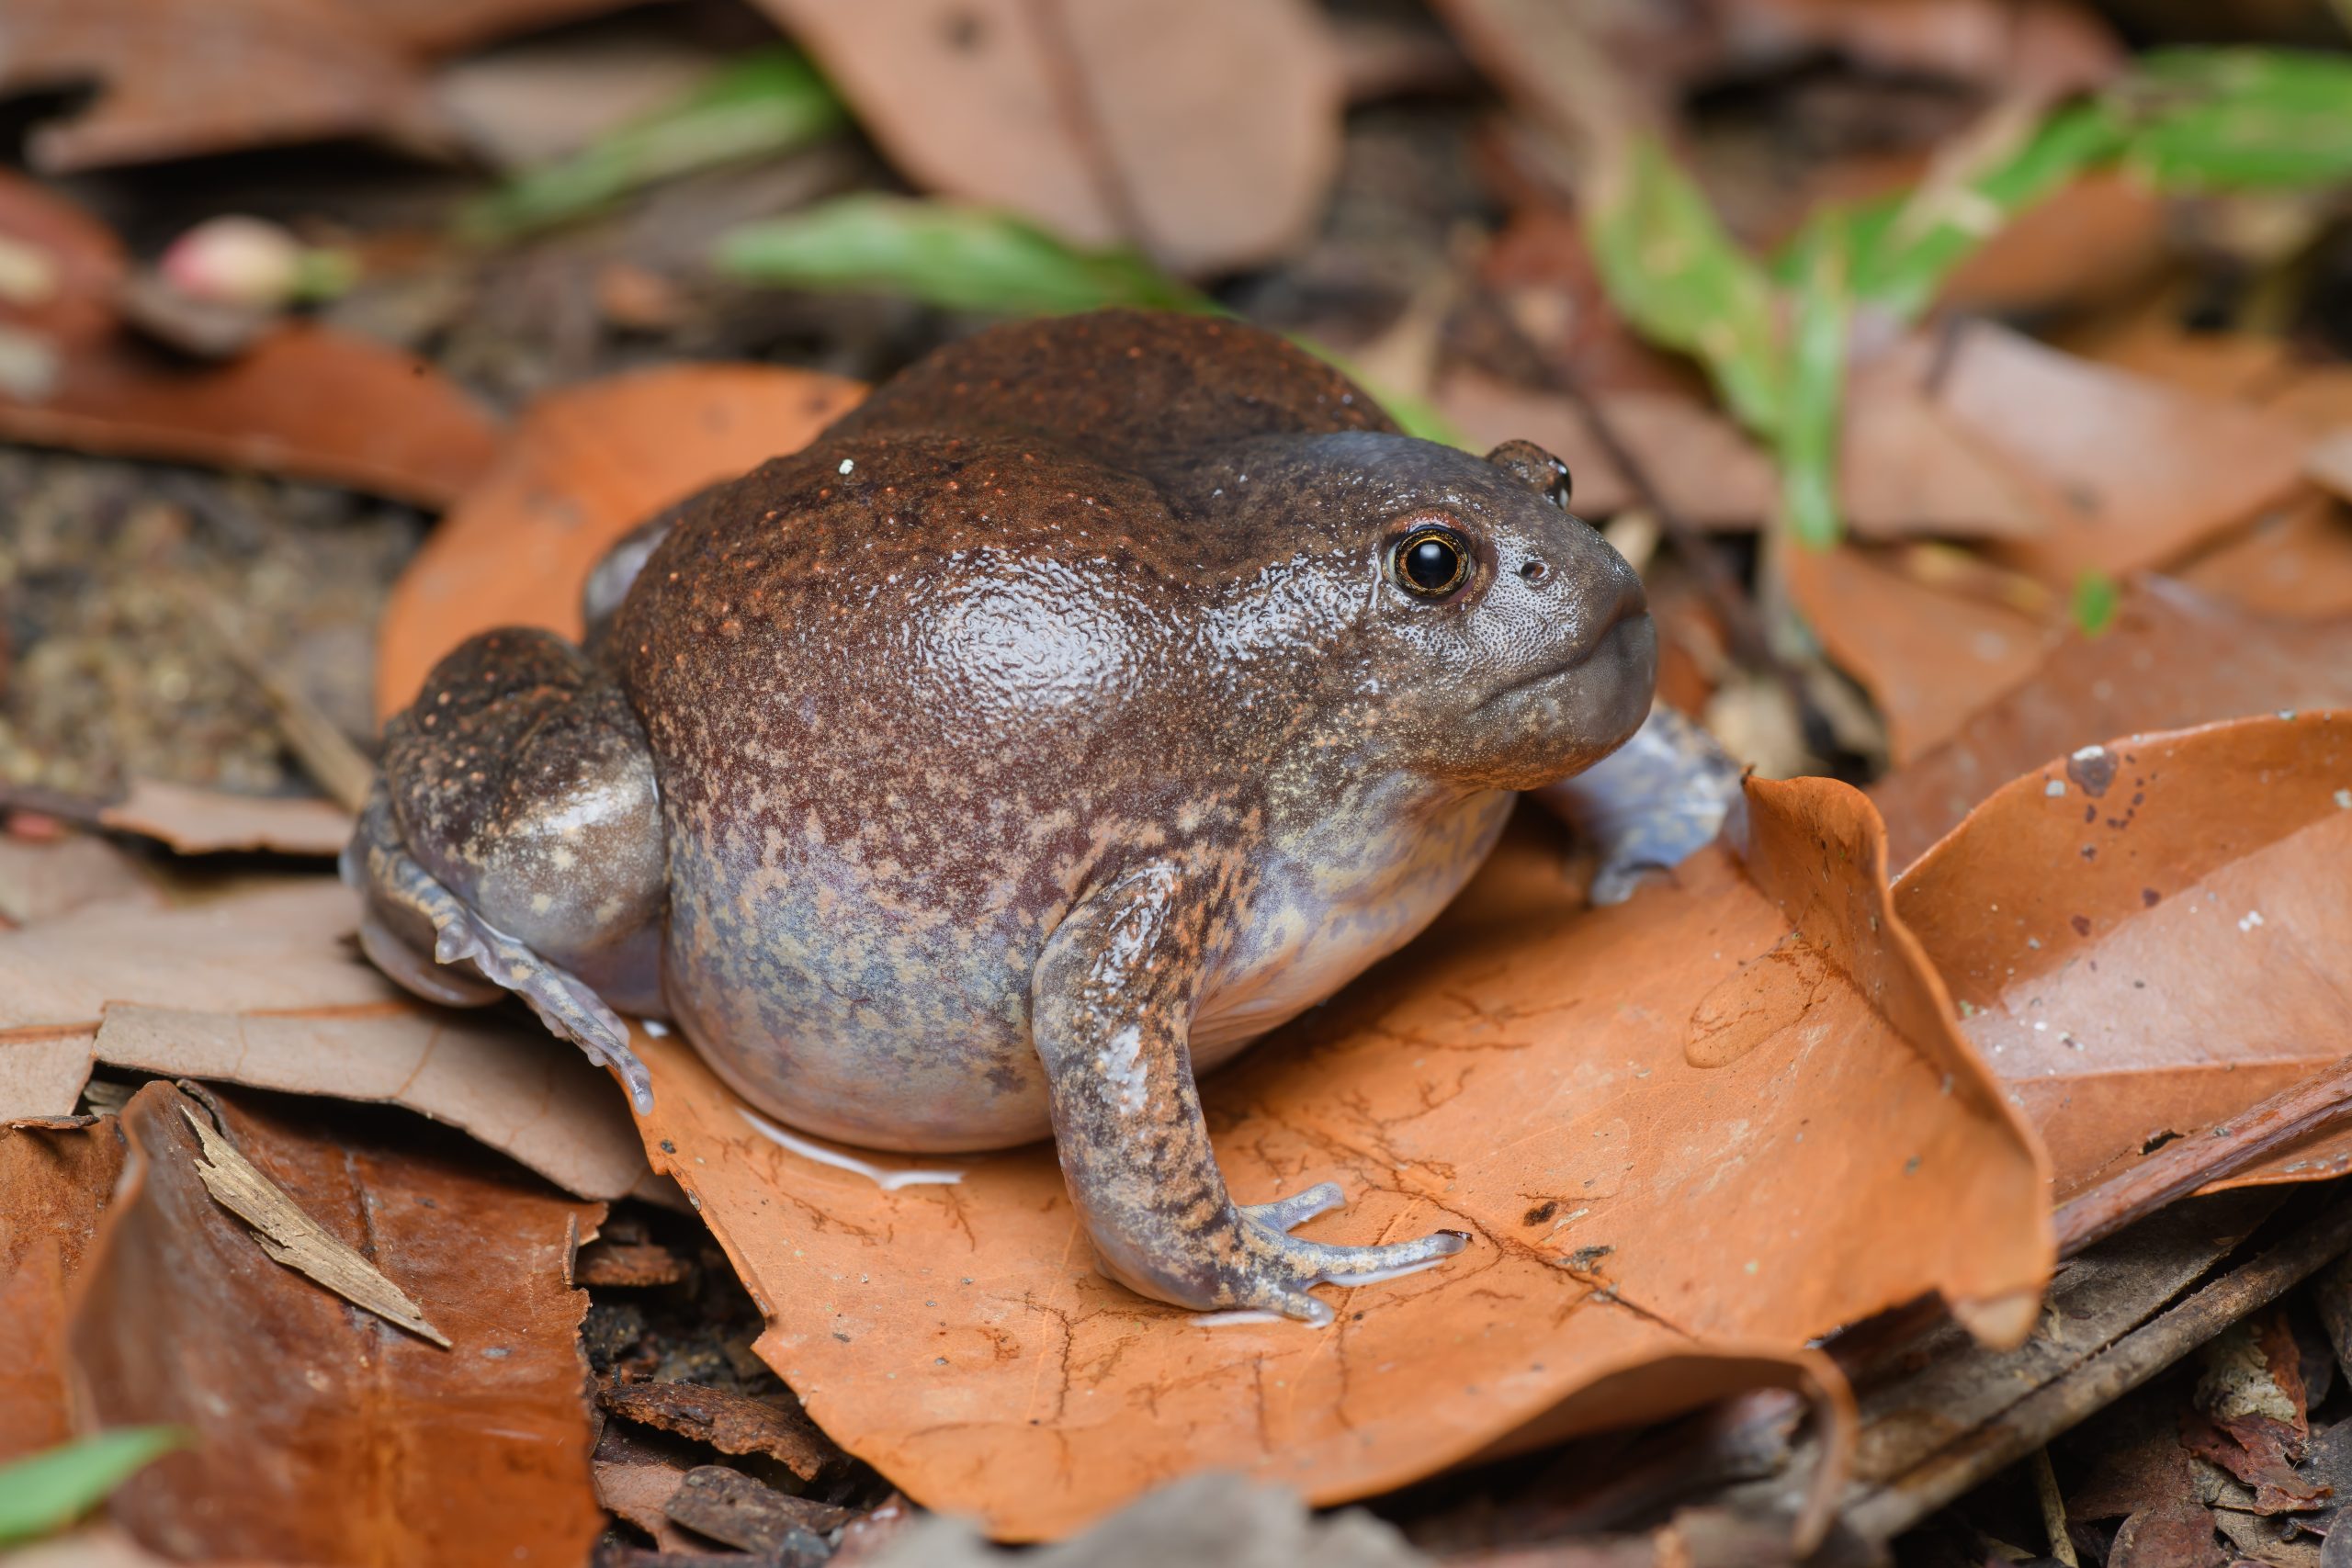
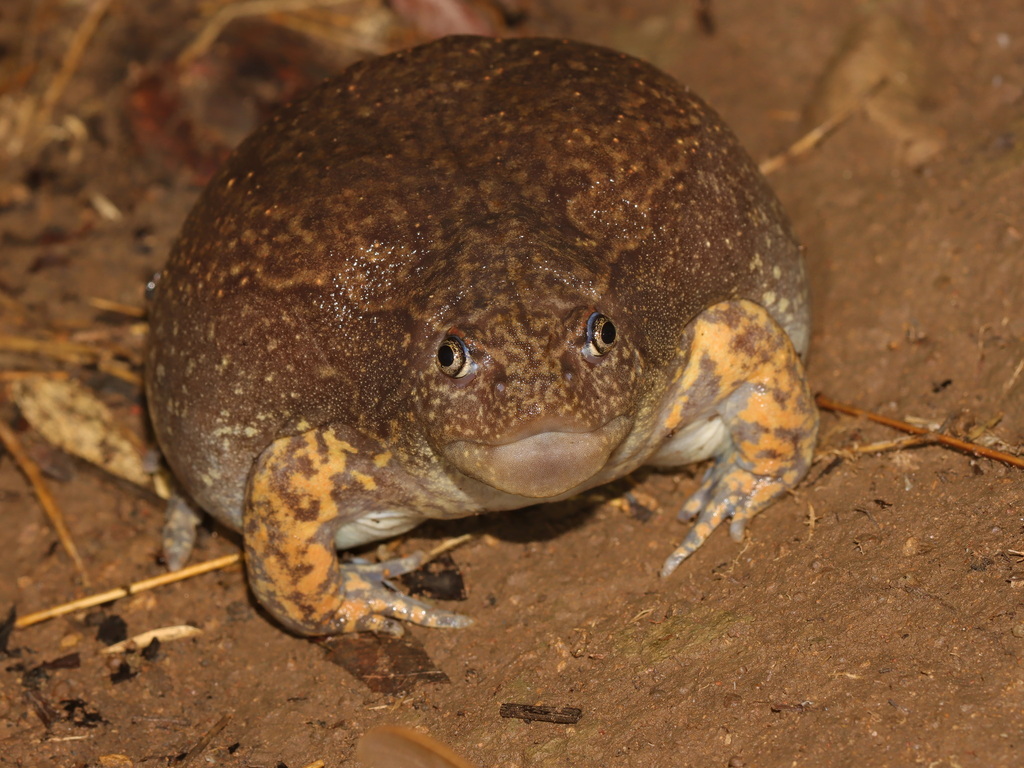
正面图补充了侧面照片看不到的宽头轮廓:两眼之间的距离、吻端的宽度和两侧前肢可同时比较。侧面则更容易看清吻端有多短以及耳上褶的位置。三张照片都显示成体;下文实验中的蝌蚪和残尾幼蛙,属于另一组发育阶段。
穴居生活,为什么会和短暂水体相连
Altig 与 Rowley 的2014年论文把该物种称为大型穴居蛙,并以柬埔寨的静态和视频影像描述繁殖。论文所见的不是漫长、分散的产卵过程,而是短暂水体中的爆发式繁殖:抱对的个体多次下潜,每一次把一部分有色卵释放到水面,形成一层薄膜。对习惯把蛙卵想成固定团块的人,这个动作尤其值得慢慢理解:下潜不是离开水面繁殖,而是把一次产卵拆成重复的水下动作,卵又回到水面形成可见的膜。
研究给出了动作的尺度。一次下潜约六秒,每次约放出二百至三百枚卵,两次下潜约相隔五秒;卵的动物极深黑、植物极黄色。数字说明研究者在影像里看见了有节奏的重复,而不是估计一整次繁殖的总卵数。它们来自柬埔寨,不是泰国雨季时刻表,却能帮助读者在观看繁殖视频时分清抱对、下潜、释放部分卵和水面卵膜这几个相连的步骤。
“爆发式”也不意味着每一只个体每天都在水里。穴居与短暂水体的组合更像两段不同的生活条件:平日,个体隐藏在地下或难以进入视野的地方;合适水体出现时,多个个体在较短窗口聚集繁殖。这里不需要从一次雨后照片推断一整年的活动规律。真正可观察的是,当时有没有水面卵膜、有没有抱对个体、周围水体是不是暂时形成,以及这些细节是否能被照片或视频保留下来。
泰国圈养研究把卵到幼蛙拆成了哪些阶段
泰国2023年研究提供了另一种看法:它不是野外普查,而是在帕尧府 Mueang Phayao 的 Tambon Tom 进行的模拟自然条件圈养实验。研究期为2021年4月至11月,使用三对健康亲体,未用促进繁殖的化学刺激。受精卵约一毫米,漂成卵团,上方颜色较深;约二十四小时后,蝌蚪从卵膜孵出。把这条时间线和柬埔寨影像放在一起,能看见相同物种研究的两种问题:一项观察产卵动作,另一项连续记录后续发育。
蝌蚪并非在某一天突然变成小蛙。该实验在第20天量得100只蝌蚪的平均头尾长30.3毫米,背部和鳍上的褐色带仍清晰;约第25天出现幼蛙,尾尚未完全消失。摘要给出的较宽范围是约25至30天到幼蛙阶段,早期幼蛙约1厘米长,皮肤深褐,背面有较浅褐色条纹。把“第20天蝌蚪”和“第25天尾未尽消失”放在一起,才能看出变态不是一条突然切断的线,而是尾、四肢和身体比例陆续改变的过程。
研究还从100个体得到0.19克的早期幼蛙平均体重,随后列出幼体45、90、135和180日龄的平均值4.14、11.10、22.00和23.62克。这组数值有一个很具体的读法:它描述的是同一圈养条件下按日龄追踪的样本均值,不能拿去估计野外一只成蛙有多重,也不能转成饲养配方。其中135至180日龄的平均增长,比90至135日龄的小;整个序列的变化并不是每45天增加同样的克数。论文还记录180日龄最大32.07克、最小15.89克,同龄样本已有明显差别。这些差别使平均值和个体范围同样值得看。
全文的阶段表让这条线更细。研究者选择了受精后1、2、7、12、18、20和24小时的胚胎图像。1小时的卵上半部黑、下半部白;2小时开始清楚看到细胞分裂,7小时上方细胞向下覆盖,12小时只留下较小的卵黄栓。到18小时,胚胎由圆形变为椭圆,神经沟可见;20小时仍在膜内,但前后及背腹已经较容易分辨。这些显微图显示,孵化之前就已有一连串形状和结构变化;到24小时,蝌蚪从卵膜孵出,记录的体长约5.7毫米。第5天平均约8.7毫米,第10天约20.5毫米,后肢芽已经可见;第15天又记录到前肢芽。这样的序列把“24小时孵化”和“25至30天出现幼蛙”之间的空白填起来:身体先拉长,肢体的出现有先后,尾则在后来逐渐被吸收。
第20天的30.3毫米是100只蝌蚪的平均值,不代表每一只都走在同一节奏上。论文特别记录,此时个体发育并不同步:有些腰部已经收窄、后肢更清楚,较慢的个体仍保留较圆的轮廓。第25天的幼体虽然更像成体,尾还没有完全消失;再过约10天,研究记录尾部才完全吸收。阅读发育表时,把这些重叠阶段放在一起,比把每一天当成所有个体同时换装的闹钟更接近实验实际。
这也解释了为什么照片里刚出现四肢的个体,不能只按体长或尾巴长短草率分成两个阶段。研究中的连续图像与平均测量应放在一起读:一个数字是样本平均,一张图是某个体当时的状态。
十一处地点与十五种单倍型,读的是什么
2019年对泰国东北部呵叻高原的研究,进一步考察了不同地点个体的遗传关系。研究者从11个地点的标本取得部分线粒体 cytochrome-b 序列,得到15种单倍型:其中5种由两个或以上群体共享,10种只出现在一个群体。单倍型可以先理解为同一段DNA中观察到的一种序列组合;它不是一种新蛙,也不是给每个地点贴上的永久身份证。
这组结果的意义在于读法。共享的5种组合说明一些地点在所比较片段上相同;局限于单一群体的10种组合,则提示另一些组合只在该研究样本里的一处被见到。论文又以分析支持两个遗传分化支系,并提出地理距离可能减少基因流。作者同时要求增加、尤其是扩大到整个分布区的采样。于是最准确的结论不是“呵叻高原只有两类蛙”,而是:在11处样本和这一段DNA中,研究者已看见值得进一步检验的结构。
这种研究也能改变看待一张现场图的方式。一张图能显示某个个体的姿态、颜色或雨后地点,却无法告诉我们它携带哪一种单倍型;一段DNA结果可以比较样本间的关系,却不能替代照片里的头部、趾端和皮肤细节。将形态、繁殖动作、发育记录和遗传样本分别放回自己的问题里,才会让“认识一种蛙”变成可以继续补充的观察,而非把所有资料压成一句标签。
看一段夜间水塘里的聚集画面
Wildside Photography 的短片记录柬埔寨蒙多基里省 Phnom Prich 野生动物保护区干涸河床中残留水塘里的个体。约14秒的画面中,多只圆鼓的蛙在水面聚集,能看到个体移动与周围水纹;它可对照成体在水中的姿态。画面没有清晰展示每次产卵的卵数,也不能代替上文论文对抱对下潜的逐次分析。
文末资料
- GBIF:GBIF species match for Glyphoglossus molossus。
- GBIF:GBIF occurrence query: Glyphoglossus molossus in Thailand。
- Zootaxa / Magnolia Press:The breeding behavior of Glyphoglossus molossus and the tadpoles of Glyphoglossus molossus and Calluella guttulata (Microhylidae)。
- Journal of Natural History / Taylor & Francis:Preliminary report on the genetic structure of Glyphoglossus molossus (Anura: Microhylidae) from the Khorat Plateau, north-eastern Thailand。
- Wichcha Journal, Nakhon Si Thammarat Rajabhat University:The Study on Developmental Biology of Truncate-snouted Burrowing Frog (Glyphoglossus molossus Günther, 1869) for Rearing System Model。
- Plazi TreatmentBank / Amphibian & Reptile Conservation:Glyphoglossus molossus Günther, 1869 treatment from New herpetofaunal observations from Laos based on photo records。
- 华欣照片:Rushenb,原始照片记录,CC BY-SA 2.0。
- 黎府照片:Rushen,原始照片记录,CC BY-SA 2.0。
- 佛丕府照片:Ian Dugdale,原始照片记录,CC BY 4.0。
- 视频:Wildside Photography,Truncate-snouted burrowing frog, Cambodia,2012年7月15日发布,约14秒。英文标题和说明,无字幕;拍摄地点为柬埔寨,观看重点为水面聚集与移动。