黑白鞍斑先把身体拆成两部分
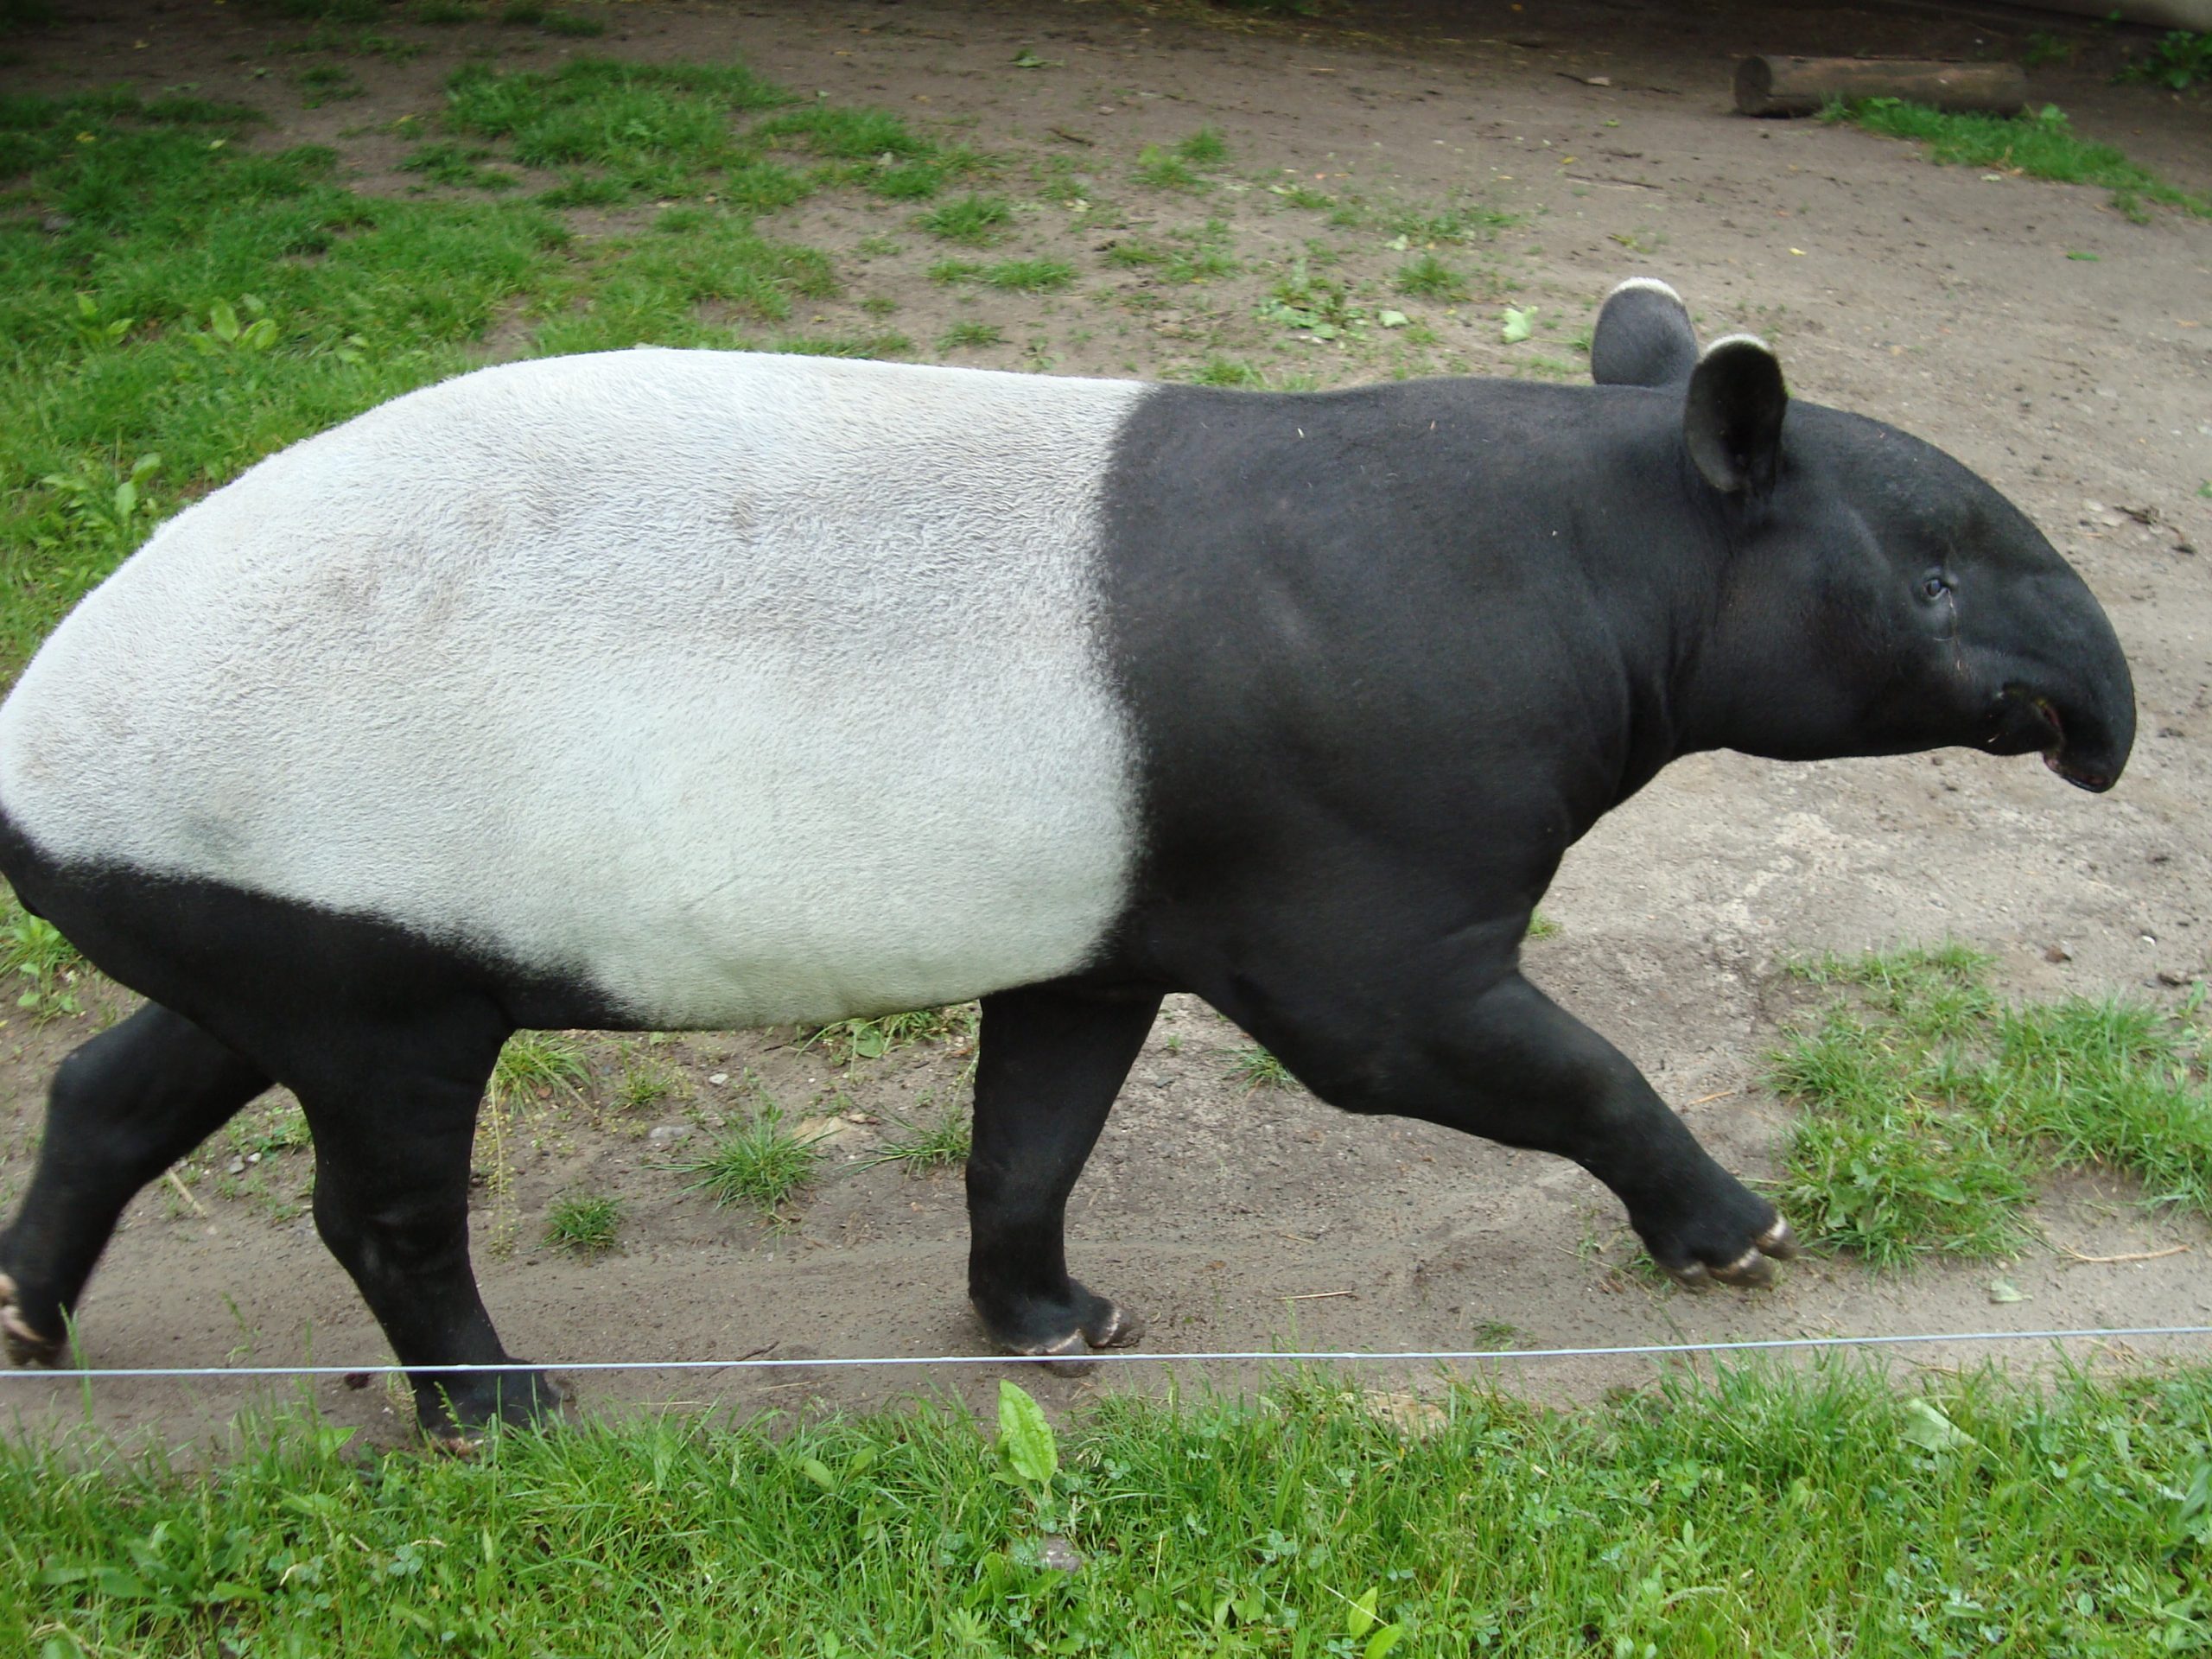
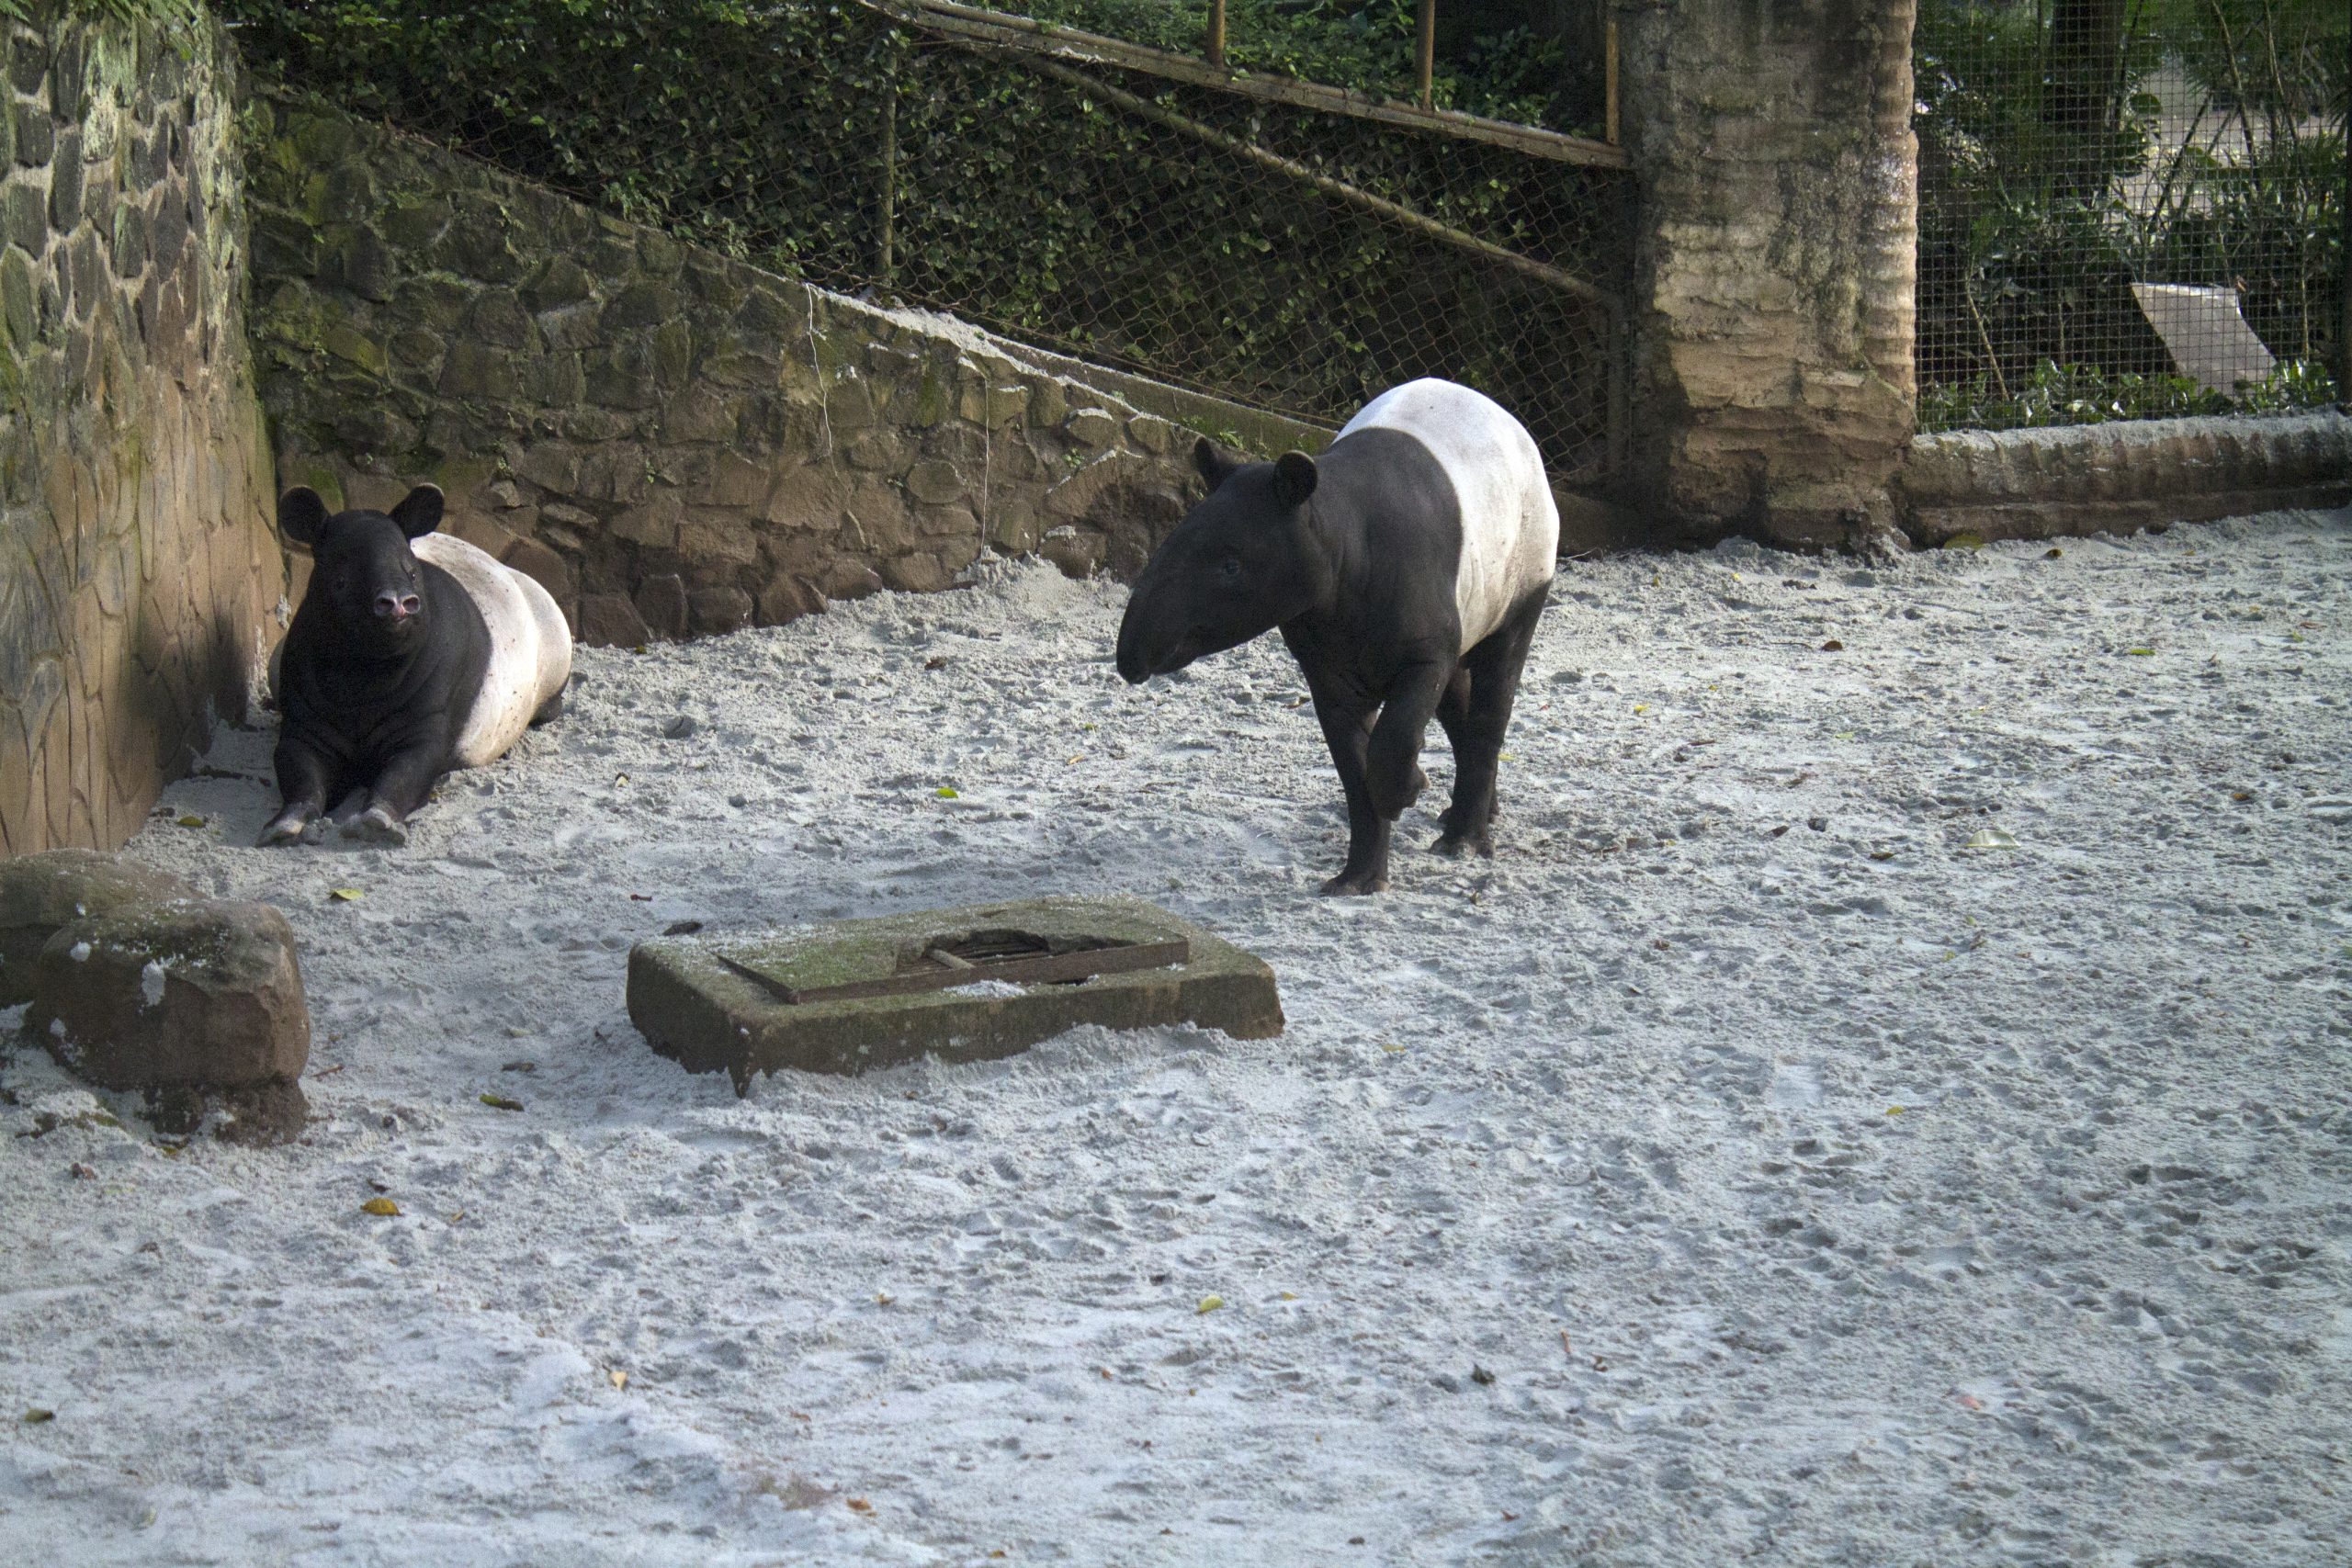
San Diego Zoo 的物种介绍将马来貘称为唯一来自亚洲的貘,并直接概括成体毛色为“前黑后白”。把这句话放回动物身上看,浅色部分并不是一条细窄腰带,而是从肩后方跨过背部、包住身体中后段的大块鞍斑;头、颈、四肢和尾端一带则显得更深。远看时,树干、叶影和暗处可能把黑色部分融进去,浅色鞍斑又把身体的连续外形打断。科普页把这种效果解释为在林下阴影中打散轮廓,读照片时至少可以先分清:这是一种成年马来貘的身体分区,而不是光线在一身纯色毛皮上造成的反光。
文中的三张照片来自海外动物园场景,不是泰国野外相机记录。它们适合看清耳朵、吻端、肩背和四肢怎样接到黑白分界线上,却不能替代对森林地点、活动时间或个体去向的判断。静态画面里最容易忽略的部位是头部前端:貘的鼻和上唇连成一段可灵活活动的短鼻。它不像象鼻那样长,却能向前探、贴近枝叶和地面,在取食时把叶片或果实送到嘴边。
San Diego Zoo 对貘类的说明还给出两个有用的身体细节:眼和耳较小,体形从前端较窄、向后更宽;前足四趾、后足三趾。这里的趾数是整个貘类共有的解剖特征,不能在一张草地远景里逐趾数出来。它仍能解释一个常见印象:马来貘低头时,短鼻会抢走注意力;侧身行走时,宽厚的后躯和鞍斑则更容易先被看见。把鼻、耳、足和毛色连起来,才能从“黑白大兽”走到更具体的辨认。
幼体为什么不是缩小版的黑白成体
如果在林下看到一只棕色底、带浅色条纹和斑点的小貘,第一反应往往是怀疑它是不是另一种动物。San Diego Zoo 的通用貘类资料把幼体形容为棕色和米色相间的“条纹西瓜”:条纹和斑点把幼体放进斑驳光影里,母兽取食时趴伏的幼体不容易以一块完整色面显出来。这个花纹并不延续到成年;该页说明,几个月后标记开始淡去,到大约六个月时外观接近缩小版成体。
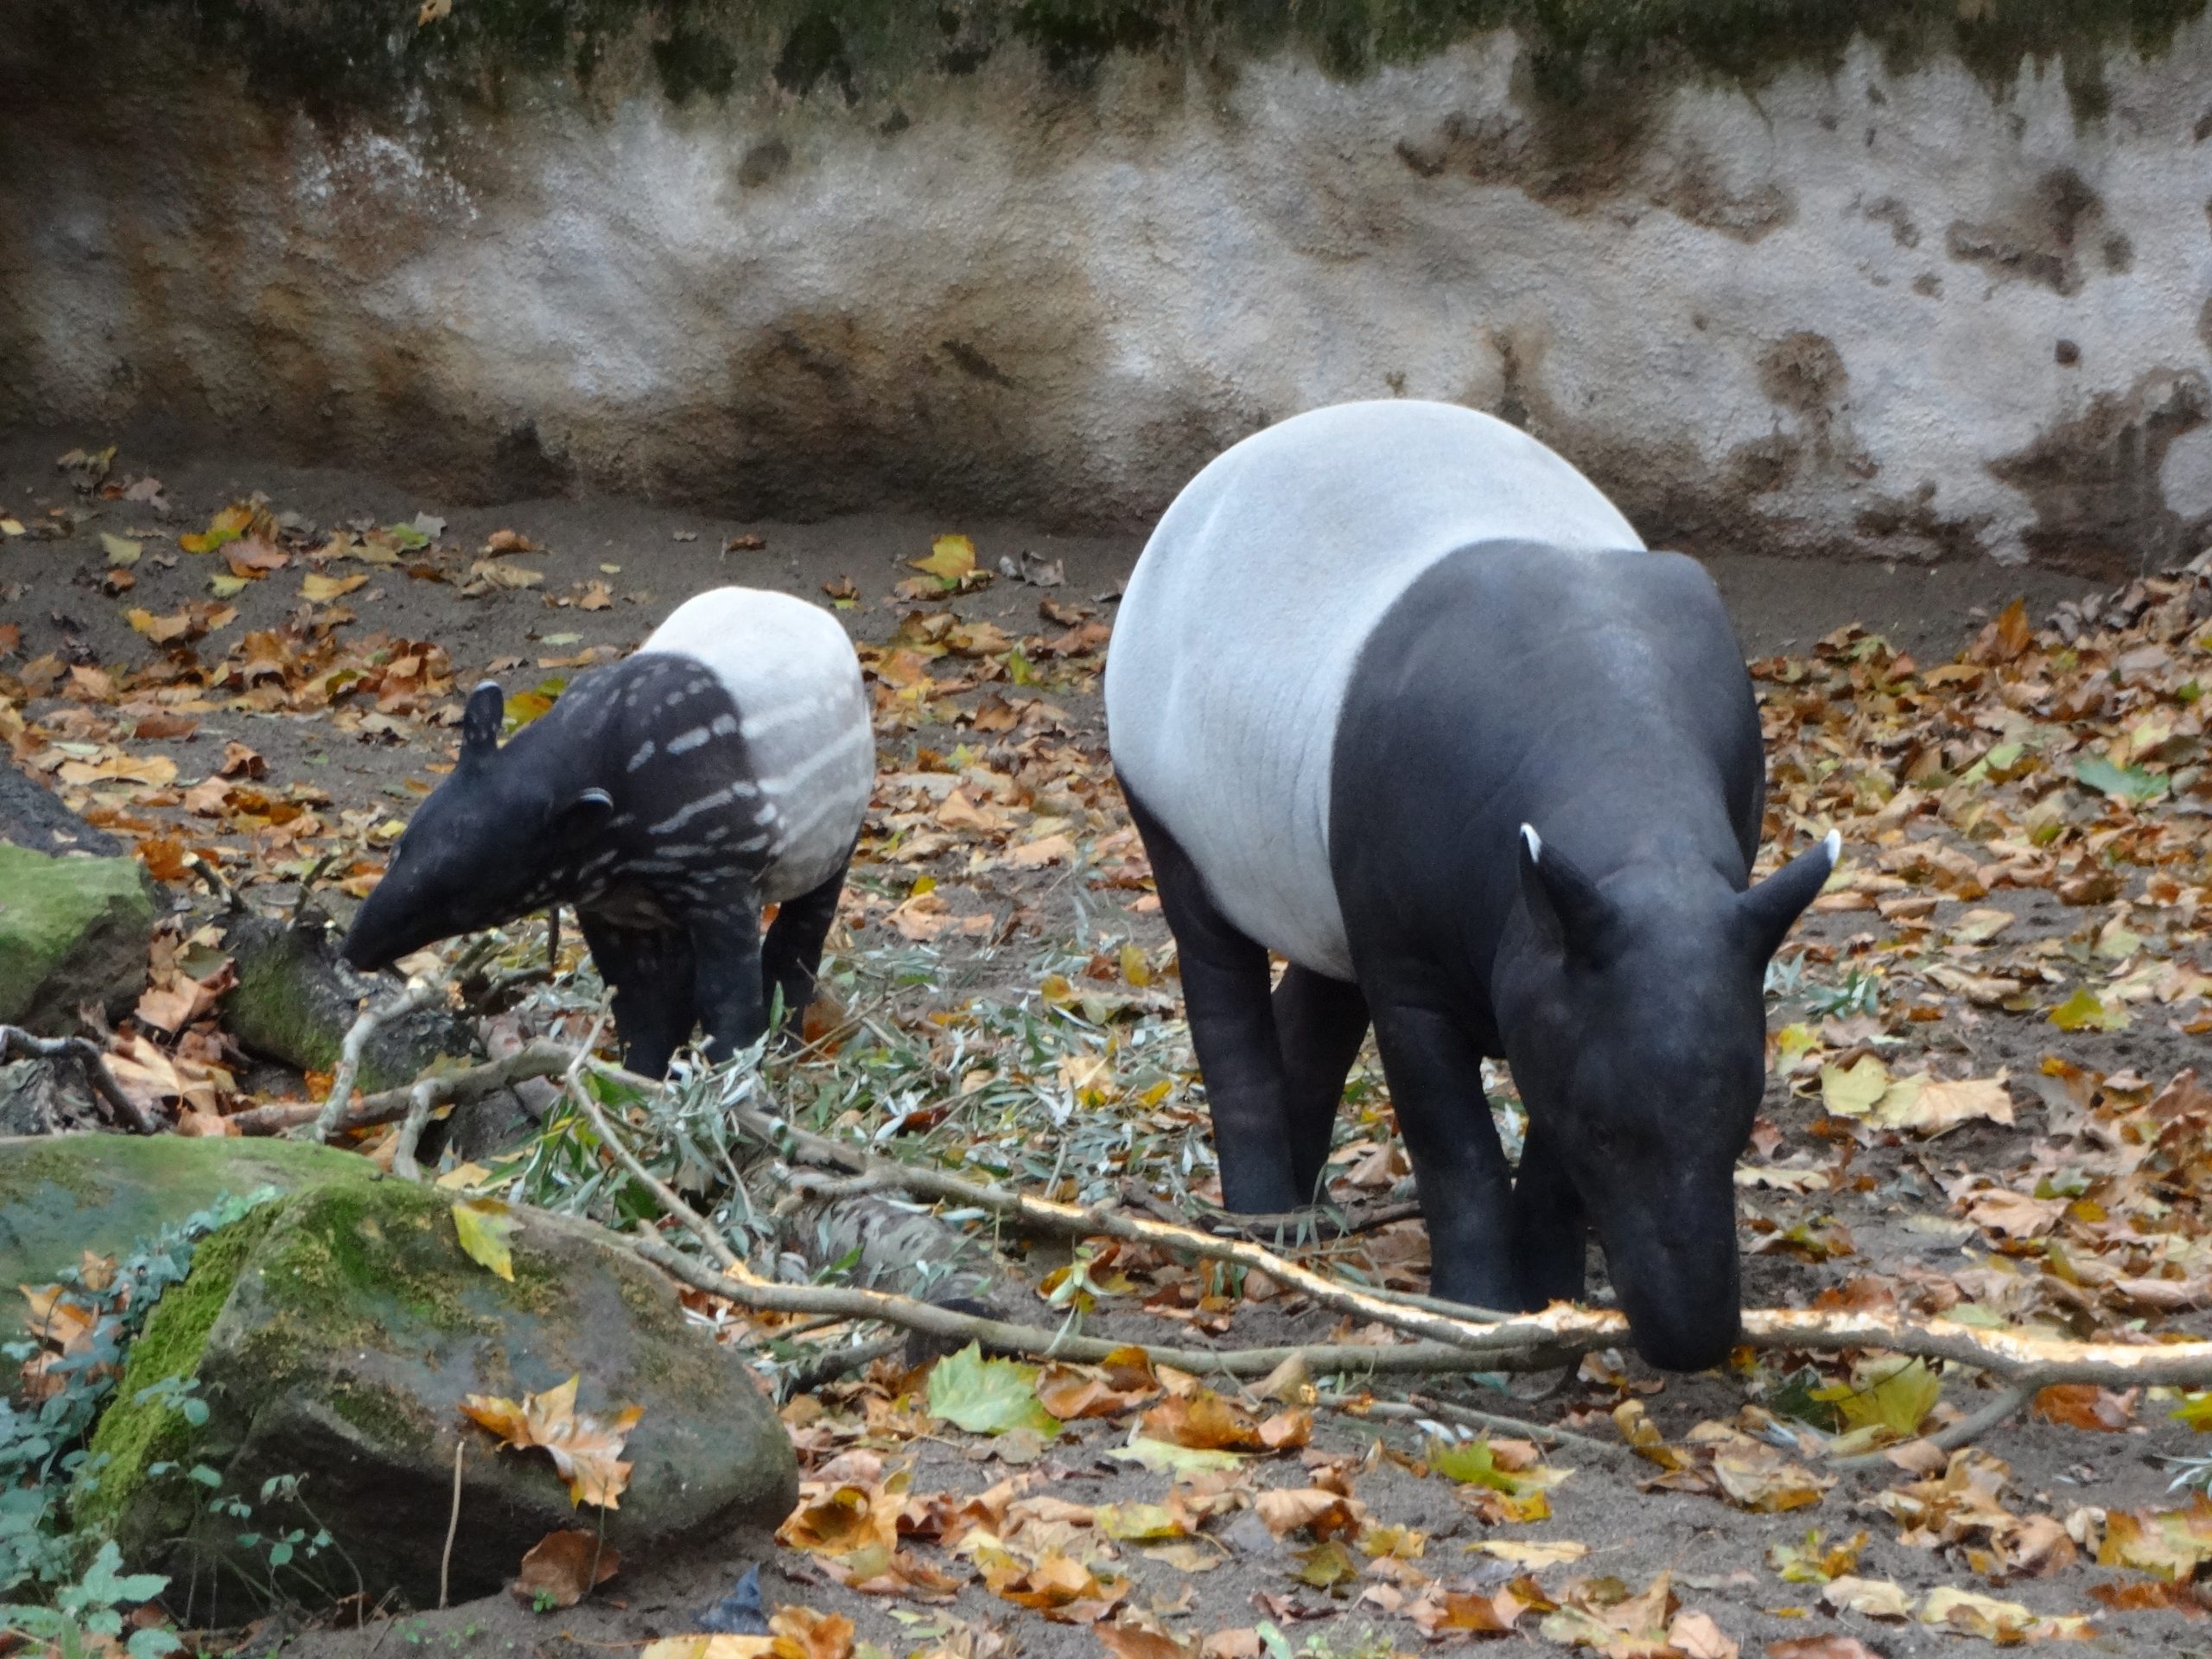
这段发育描述给照片判断留下一条实用原则:幼体的条纹不能用成年鞍斑去套,成年黑白鞍斑也不能倒推幼体当时的年龄。资料中的“几个月”和“约六个月”是动物园面向貘类的概述,不是泰国野外马来貘的逐日生长表。对一张没有日期、尺标和母仔关系的画面,更稳妥的做法是描述所见的条纹、斑点、耳缘和身体比例,而不凭外观写出确切月龄。
幼体和成体毛色的转换也让黑白鞍斑多了一层意义。成体的花纹把大块身体分成深浅两段;幼体的细碎条纹和斑点则把较小的身体拆得更零散。两种图案都与林下光影有关,却不能被简化成同一套配色的“深浅版本”。看见条纹时,先问这是不是幼体阶段;看见鞍斑时,再看它是否已经形成成熟个体的黑前白后分区,比先问“这只长多大”更能读出画面里的信息。
短鼻怎样把叶片、果实和水边连到一起
马来貘的短鼻由鼻和上唇共同构成,可以灵活移动。San Diego Zoo 的说明写到,貘可用它抓住枝条、剥取叶片,也能把果实从低矮植被或地面送进嘴里。该页的通用食物描述包括草、植物和果实;这是一张广义的貘类食物图,而不是对某条泰国河谷、某一季节胃内容物的比例统计。真正值得记住的是取食动作:短鼻能抓住枝条、剥取叶片,并将果实带回嘴边。
这种结构也和水边生活相连。动物园说明提到,受惊时貘能进入水中,让鼻端露出水面呼吸;它们也会在水中取食水生植物、降温或清洗皮肤寄生物。这里呈现的是貘类的行为能力,不该变成“每一只马来貘每天都要下水”的固定日程。对森林观察者而言,长鼻、泥地趾印、水边植被和夜间活动往往出现在同一组问题里:动物怎样在密林中找食物,怎样绕开障碍,又怎样在白天不易看见的条件下穿过不同地表。
泰国相机调查给出的不是一张全国数量表
2012 年一项泰国研究的出版方摘要使用了九次相机陷阱调查、七个面积大于一千平方公里的保护地复合体记录,讨论环境变化和人为干扰与马来貘出现之间的关系。摘要报告,马来貘在被采样地点中检出比例为13%,并与常绿林显著相关;多元逻辑回归模型对出现的预测结果为87%。这些数字首先说明研究者怎样把许多相机点的检出与环境变量放在同一模型中,而不是给每片保护地报出存活多少头貘。
摘要还称,模型中年降雨量和距森林边缘的接近程度与出现呈正相关,但作者随即提出另一种解释:在他们的具体研究点,更湿的常绿林往往出现在较高海拔、离森林边缘更远的位置。因此不能把结果剪成“马来貘喜欢森林边缘”这句简单结论。边缘、海拔、降雨和常绿林在同一幅景观里可能彼此缠在一起;模型能指出值得继续调查的组合,却不能替实地观察宣布单一原因。
南泰的18条廊道,画的是潜在通路
2019 年 Walailak Procedia 的一项南泰研究把“森林之间怎样连起来”变成了一张阻力地图。研究者把面积大于13平方公里的常绿林斑块视为潜在适宜生境,这个阈值取自文中引用的泰国马来貘平均家域大小。它是模型选定的工作尺度,并不是说13平方公里以下永远不能有貘,或13平方公里以上必定已有可繁殖的种群。研究使用泰国土地发展部的2016年土地利用与覆盖资料,在 ArcGIS 中分类,再用 Circuitscape 4.0 的电路理论和随机游走计算各个森林斑块之间的潜在连通性。
阻力图中的取舍非常具体。常绿林被赋予最低移动阻力;沼泽林、草地、沼泽与自然水体阻力更高;人工林、果园等农业地的阻力再高一些。居民地、道路、常年农业地和人工水体则被设为完全屏障或无数据区。这样的设定不是从某一只带项圈的马来貘脚下直接画出来的路线,而是把土地覆盖类型转换成一组模型假设,再让程序计算哪几块森林之间的“电流”更容易通过。
模型在南泰找到78个潜在适宜森林斑块和18条潜在扩散廊道。廊道的分布也不是平均铺开:春蓬森林复合体内有9条,Hala-Bala 有1条,Khao Banthad 有2条,Khao Luang 有2条;Khlong Saeng-Khao Sok 复合体内部没有模型识别出的廊道;Khlong Saeng-Khao Sok 与春蓬两个复合体之间另有4条。其中39个森林斑块位于五个森林复合体的27处保护地内,其余39个在复合体外。保护地内的斑块总面积约10,586.40平方公里;这些是地图提取的森林面积,并非相机确认的占用面积。春蓬和 Hala-Bala 的斑块较多,而 Khlong Saeng-Khao Sok 有较大的常绿林斑块、斑块数较少。这些结果可帮助人们把注意力放到某些可能断开的森林之间,却不能当作18条已被摄像机确认的迁徙走廊。
把这项模型与2012年相机调查放在一起,读者能看出两种问题的差别。相机陷阱从采样点问“有没有检出”;廊道模型从土地覆盖问“在给定阻力下,哪里可能较容易连通”。前者的13%不是全国存量,后者的18条也不是18次实测穿越。它们都把常绿林放到讨论中心,却各自停在不同的证据层次。若未来要判断一条模型廊道是否真被使用,仍需要野外相机、足迹、遗传样本或追踪资料把地图上的潜力变成现场证据。
马来西亚的夜间记录怎样帮助读泰国问题
2018年发表的一项相机陷阱研究来自马来西亚半岛 Endau Rompin 景观。2015年,研究团队在约3,454平方公里范围内设置238个相机点,取得18,254个相机夜;设备放在兽径和旧伐木路上,以提高大型兽类的检出机会。马来貘有361次相互独立的拍摄记录,其中07:00至19:00的记录占15.9%,作者据此将它在该景观中的日活动形态称为强烈夜行。
361次独立记录不是361头马来貘。它记录的是相机在特定道路和兽径上触发的独立事件,研究本身也说明这些设备原是老虎调查的附带资料。这样的方法很适合展示一天中何时更常被拍到,却会受到相机位置、路线利用和季节的影响。它提供的是马来西亚这片景观中值得比较的夜行证据,而不是把泰国任何一处保护地的马来貘活动时间锁死在同一张钟表上。
名称的一个小变化
马来貘有两个会同时出现的学名。GBIF 对 Tapirus indicus 的匹配把它列为同物异名,并把 Acrocodia indica 作为接受名;论文、动物园资料和大量常用文献仍使用 Tapirus indicus。本文沿用读者较熟悉的马来貘与 Tapirus indicus,并在资料来源中保留 GBIF 的分类处理,避免把名称差异误读成另一种动物。
近距离看短鼻取食
丹佛动物园保护联盟的这段影片介绍圈养马来貘 Rinny。开头能看到短鼻和嘴唇贴近工作人员手中的叶菜,黑色头颈与浅色鞍斑也同时入镜;后半段展示工作人员在围栏外使用带球端的长杆与它互动。静态照片适合辨认毛色分区,连续影像则能看清鼻端怎样靠近食物、头部怎样转动。这是美国动物园的照护场景,不能当成泰国野外觅食或森林通行的记录。