先从泰国照片认出一只水雉
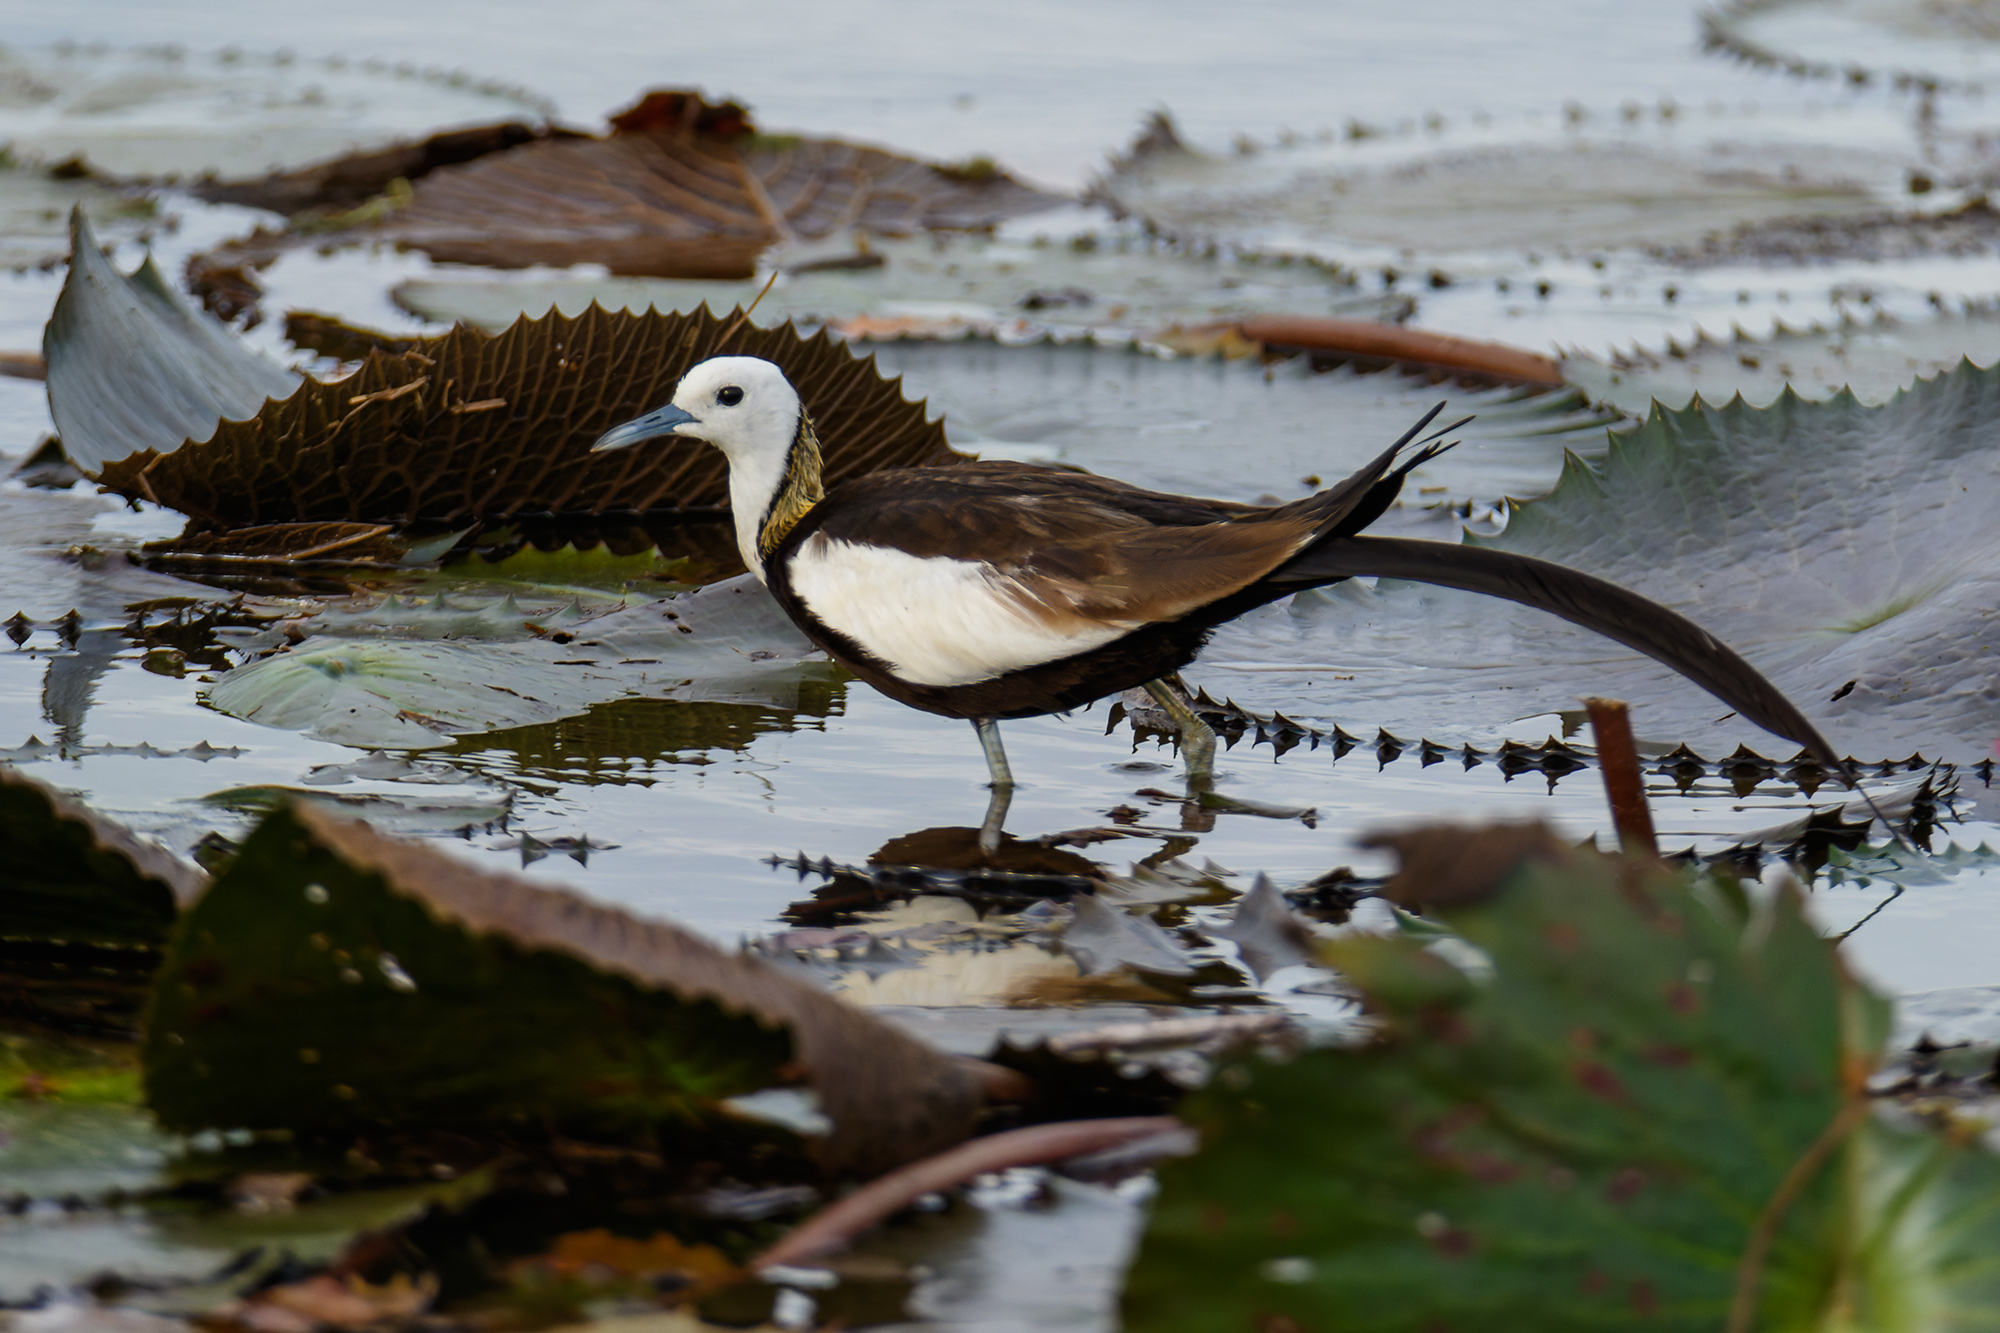
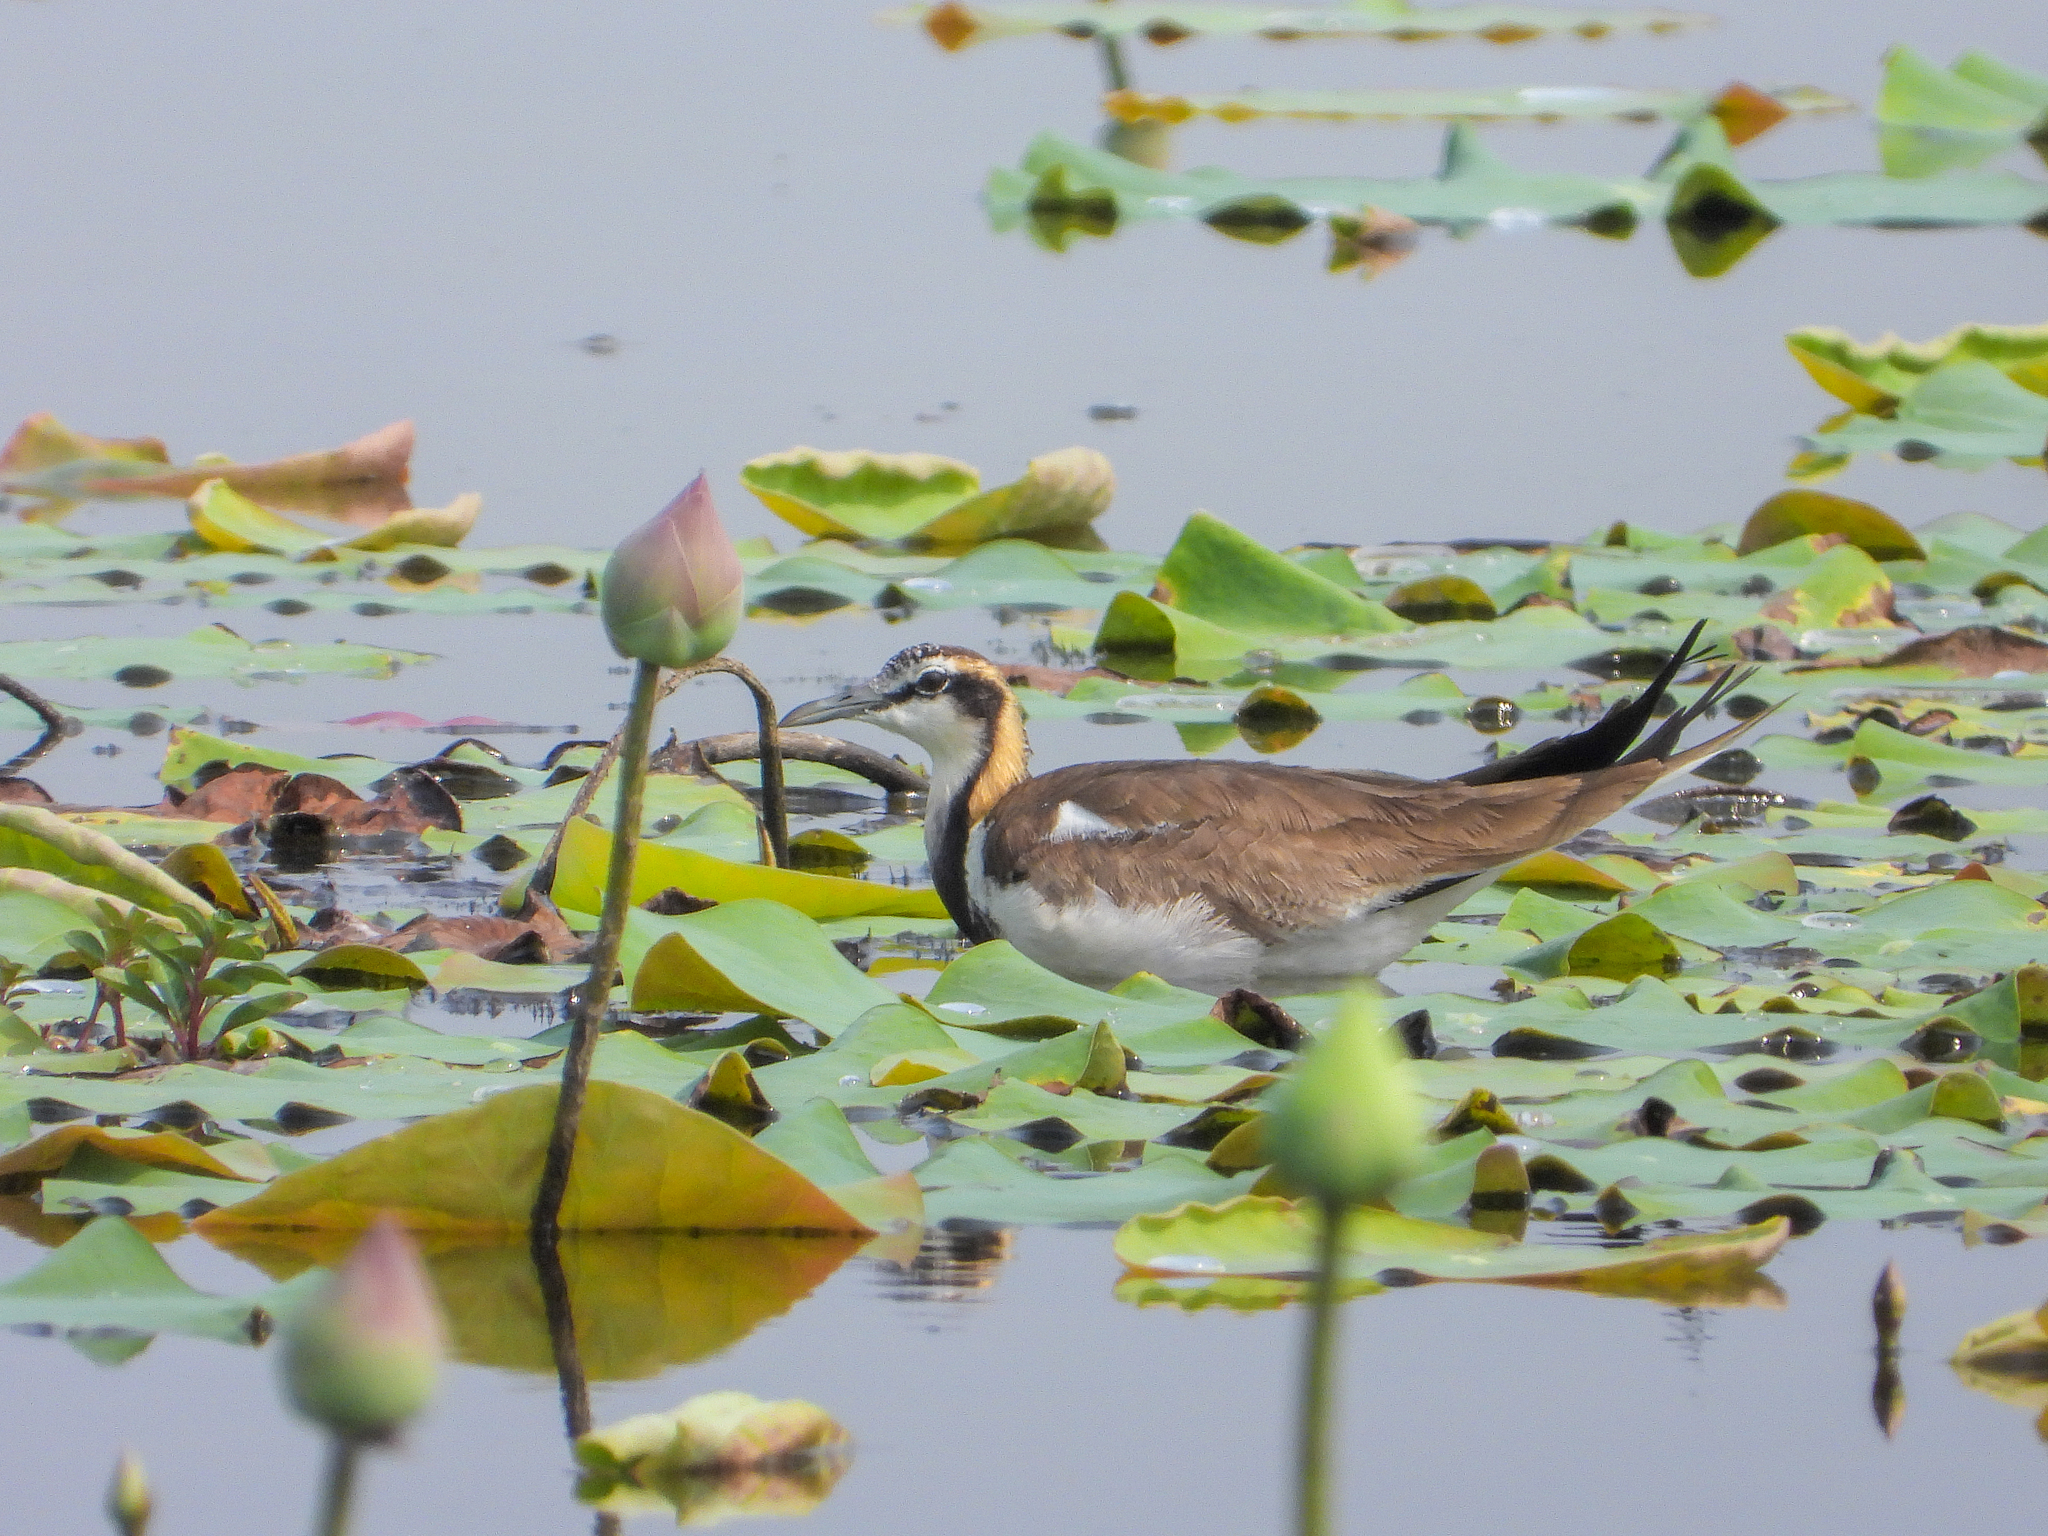
三张现场照片都记录为泰国的水雉,但它们来自不同地点、不同观察者,也不是同一只鸟的连续故事。汶博拉碧的照片里,一只鸟在浅水和荷叶之间活动,白色头颈、褐色翅背、黑色腹部与很长的尾羽同时清楚可见。这样的画面适合用来建立轮廓感:看到白色头颈与深色腹面之间的反差,再看身体后方的延长尾羽,辨认时就有了比“水边一只鸟”更具体的线索。
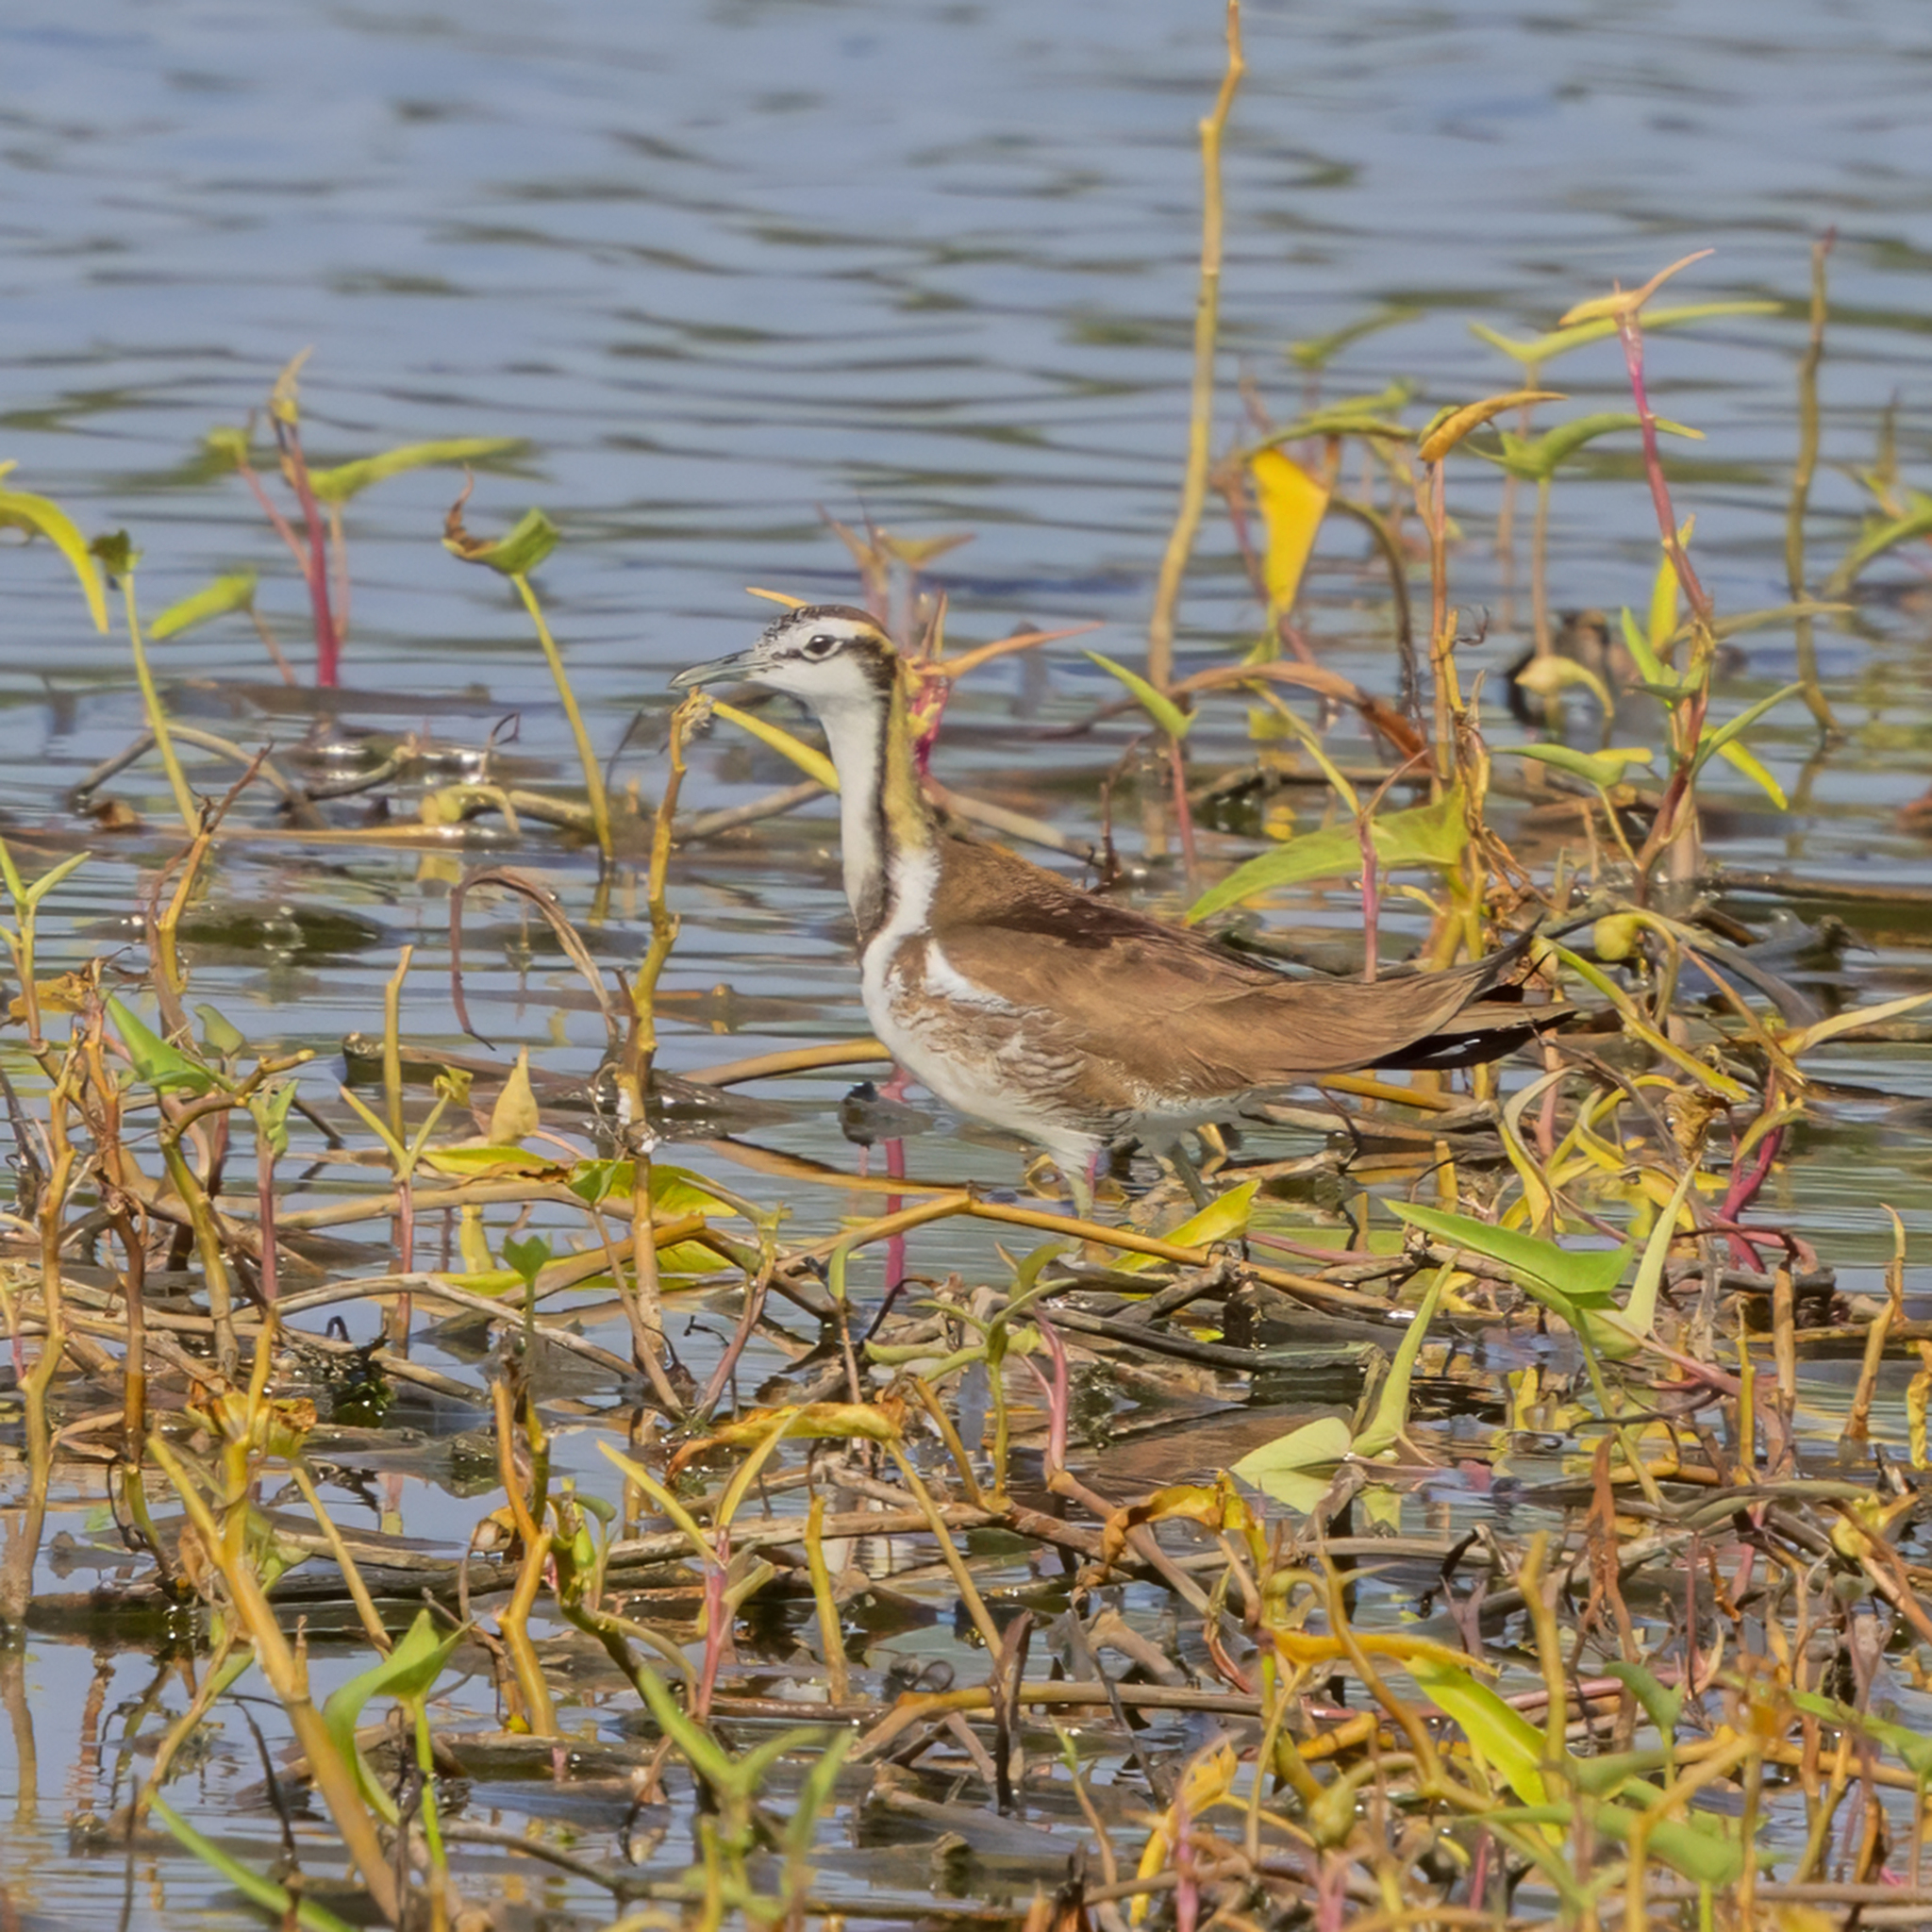
曼谷拉甲邦的另一张照片把水雉放在荷叶和花苞之间,可见褐色头顶、白色眉纹和脸喉、颈后的黄色、黑色颈胸纹,以及延长但不如汶博拉碧画面那样突出的尾羽;夜功府安帕瓦的照片则更容易看清它站在浅水和挺水植物旁的横向体态。这些画面能支持的是具体地点出现了一只被记录为水雉的鸟,以及画面中实际看得到的颜色、姿态和植被背景。它们不能单凭一张照片判断个体性别、年龄、是否正在繁殖、吃什么,或把荷叶背景解释成足部受力的证明。繁殖行为的细节,要回到有连续监测的研究。
官田的研究如何认出每一只鸟
这项研究的地点不是泰国,而是台湾台南官田的水雉生态教育园。研究从 2019 年 6 月下旬持续到 9 月初,覆盖该繁殖季的后半段。约 0.15 平方公里的研究地点分为 25 个池塘;全区都用来寻找繁殖记录,但只有 7 个焦点池塘用于行为观察和个体辨认,因为其他池塘的能见度或时间条件不足。最大的 P-5 池塘视野较好,承担了多数观察;部分池塘从固定木制隐蔽棚观察,另一些使用观察期间保持位置不变的竹制便携棚,鸟类已习惯这些设施。这里的地点、时段和样本边界都属于官田,不能转述为泰国的繁殖资料。
焦点池塘中只有两只雄鸟带环,研究者主要画下繁殖羽的细节来辨认个体:头顶黑斑、翅上的白斑和尾长。每个个体的图样在季内多次复画,又以盲法重画来检查一致性;这些图只用于一个繁殖季,研究并没有把它当作跨年不变的标记。领地位置同样不能充当身份证明:M13 与 M10 曾在不同时间于同一巢点筑巢。借由羽色细节,研究者辨认出 12 只雌鸟和 23 只雄鸟;一只雌鸟和一只雄鸟识别后很快离开焦点池塘,后续结果将它们剔除。
配对也不是把相邻的两只鸟直接归为一对。研究要求反复看到地面或空中展示、鸣叫、交配或筑巢,并观察到两鸟相邻取食时没有攻击行为。许多关系会保持数周,才可由多次观察推断社会配对;这不是遗传亲子鉴定,不能用来断言每枚卵的遗传父系。
从一窝蛋到一群雏鸟,研究者怎样跟踪
巢与雏鸟监测把“谁照料后代”落到可追踪的对象。团队在 11 只雌鸟的领地内,跟踪了 19 对雌雄组合所产生的 23 个巢和 11 个育雏群。发现巢后,正在孵卵或站在蛋上方遮阴的雄鸟被记为父方;与它维持配对的雌鸟被记为母方。产卵期每天用望远镜检查,孵化期至少每三天一次,接近预期孵化日又每天检查;预期日约在第一次产卵后 23 天。至少一枚蛋孵出才算该巢孵化成功。出雏后,育雏群至少每三天观察一次;至少一只雏鸟达到 40 日龄才算育雏成功。论文把 40 日龄作为其成功判据,并注明该物种准确离巢日龄尚未确定。
行为资料也有明确的采样节奏。研究者使用望远镜,在到达地点至少 30 分钟后才记录,以减少抵达造成的干扰;攻击计数、配对行为和育雏陪伴是三类不同观察。配对行为对焦点个体每 20 秒扫描一次、连续 30 分钟;育雏陪伴则每 30 秒扫描一次、连续 60 分钟。鸟被高草遮住或不在视野时记为 NA,计算各行为时间比例时排除这些记录。这样的做法不能补上全天候行为,却说明论文的比例来自按间隔记录的可见个体,而不是单次印象。
巢的结局也说明,形成配对和产下一窝蛋,并不保证雏鸟最终独立。23 窝中有 11 窝至少孵出一枚蛋,孵化成功率为 47.8%;已出雏的 11 群里,研究结束时只有 6 群能确定后续命运,其中至少 4 群有一只雏鸟达到成功判据。其余群体没有完整结局记录,不能一律记为失败。研究者没有直接看到巢和育雏群失败的原因,因此也不能根据湿地里有鱼、蛇或猛禽,就认定某一窝被它们捕食。
这组结果与行为扫描回答的是不同问题:巢监测提供产卵到出雏的进程,扫描记录则比较可见时段里亲鸟如何分配时间。一只雄鸟守巢或靠近雏鸟的比例较高,并不自动证明它照料的巢必然成功;要解释成功率,还需要具体巢的完整经历。
雌鸟为什么更常出现在领地冲突里
研究把攻击性行为定义得很具体,包括竖立威胁姿势、翼刺展示、地面攻击和空中攻击;求偶行为则包括低头姿势、常伴随叫声的展示、骑跨和交配。结果显示,在官田这个种群中,雌鸟对同种个体提供了大部分领地防卫。雄鸟也会参与攻击性行为,只是频率低于雌鸟。这里的重点不是把雌鸟塑造成永远攻击的“反转版雄鸟”,而是同一繁殖种群中,获得并维持与雄鸟相关的空间和关系,确实让雌鸟投入了更多同种间防卫。
求偶的结果又让图景更复杂。研究原先预期,雌鸟在开始新一窝蛋时可能投入更多展示;实际观察却是雄鸟花在求偶行为上的时间更多。也就是说,“性别角色反转”不是把通常印象中的每一项行为整齐地对调:雌鸟较多地防卫领地,并不能推出雌鸟必然较多求偶;雄鸟承担更多照料,也没有使它们退出配对和展示。把这几种行为拆开,才看得见不同环节的分工。
领地防卫的比较也有一个明确的观察范围。攻击互动只在 P-5 统计,因为该池塘视野能同时覆盖多数已识别个体:常驻的 17 只已识别鸟中有 4 只雌鸟、11 只雄鸟参与过攻击记录。观察者从互动开始一直记到其中一只或两只鸟飞走、走到池塘另一处而互动停止,才算一次;雌雌、雌雄、以及共享或不共享同一雌鸟配对关系的雄雄互动分别编码。结果是雄鸟显著较少卷入攻击,雌雄双方则都较多参与同性间互动。这个结论说明的是官田 P-5 的可见、可识别个体,而非任意湿地的攻击频率。
求偶时间的比较同样来自有限但可重复的扫描。研究做了 44 次配对行为观察,涉及 16 只雄鸟和 10 只雌鸟;5 对只观察一次,其余 11 对至少观察两次,其中一对观察 9 次。双方同时可见时同时记录,模型再把一天中的时段和彼此处于 3 米内的时间纳入考虑。雄鸟在求偶行为上花的时间更多,求偶和移动在下午更多;这与雌鸟更常参与领地防卫并列,正好说明“角色反转”并不是所有行为都由同一性别包办。
一只雌鸟可以维持多个配对关系
官田样本的社会配对呈现高度多配偶:11 只焦点雌鸟中有 9 只在研究期内与不止一只雄鸟配对,比例至少为 81.8%;每只雌鸟的配偶数为 1 至 5,平均为 2.4。这个比例只属于官田 2019 年的样本。研究记录到雌鸟与不同雄鸟依次交配、产卵,同时仍维持多个配对关系;因而“依次产卵”与“同时保有配对”要分开理解。
F3 是最直观的实例:这只雌鸟的领地内有三只雄鸟同时为不同的一窝蛋孵化。论文据繁殖时间线推断,同一雌鸟在为一只雄鸟完成一窝蛋的产卵后,到与另一只雄鸟开始新一窝蛋之间约相隔 7 天;这描述的是该观察到的时间格局,不是固定周期。研究共记录 22 次交配,涉及 7 只雌鸟和 9 只雄鸟,交配只在下午观察到,且并非每天连续监测,因此这些次数也不是群体全部交配的总量。
孵卵与育雏:雄鸟承担直接照料,雌鸟并非完全消失
研究把照料拆成两层。卵照料包括坐在蛋上孵卵和站在蛋上方遮阴;直接育雏指成鸟站着或坐着,让雏鸟在翅下。论文报告孵卵仅由雄鸟进行,直接育雏也只观察到雄鸟。雌鸟并非完全不在雏鸟附近,但雌鸟出现时属于育雏陪伴,不能把这个行为等同于翅下育雏。
育雏陪伴的样本来自 10 个不同育雏群,涉及 5 只雌鸟和 8 只雄鸟;研究把成鸟距雏鸟约 3 米以内定义为陪伴,因为在这个距离内观察到叫声、低头或竖立威胁姿势等互动。平均而言,雄鸟在雏鸟 3 米内占观察时间的 54.2±6.9%,雌鸟为 5.7±2.2%。在可比较的 22 次观察中,雄鸟有 21 次、雌鸟有 8 次被记录为陪伴;另有 11 次观察中雌鸟一直未进入视野,因而没有雌鸟数据。这个差距支持雄鸟主导育雏陪伴,也保留了雌鸟偶尔参与陪伴这一实际结果。
陪伴时间还会随着雏鸟年龄改变:分析把雏鸟分为不足 10 日、10 至 19 日、20 至 29 日与 30 日以上四段;成鸟在雏鸟不足 10 日龄时,留在 3 米内的时间显著高于雏鸟超过 20 日龄时,早晚时段本身没有显著差别;这四段是统计分组,不能替代对离巢年龄的判定。研究并没有把“在附近”误当成所有行为相同;在成鸟确实靠近雏鸟时,雌雄所做的多数活动相似,差别在于雄鸟有直接育雏记录,也更可能处在需要应对其他个体的场合。由此可以读出两层结果:雄鸟不是只在巢期短暂出现,而是从卵照料延续到雏鸟阶段;雌鸟的低比例陪伴则是被记录到的附带参与,不能写成直接替代雄鸟的育雏。