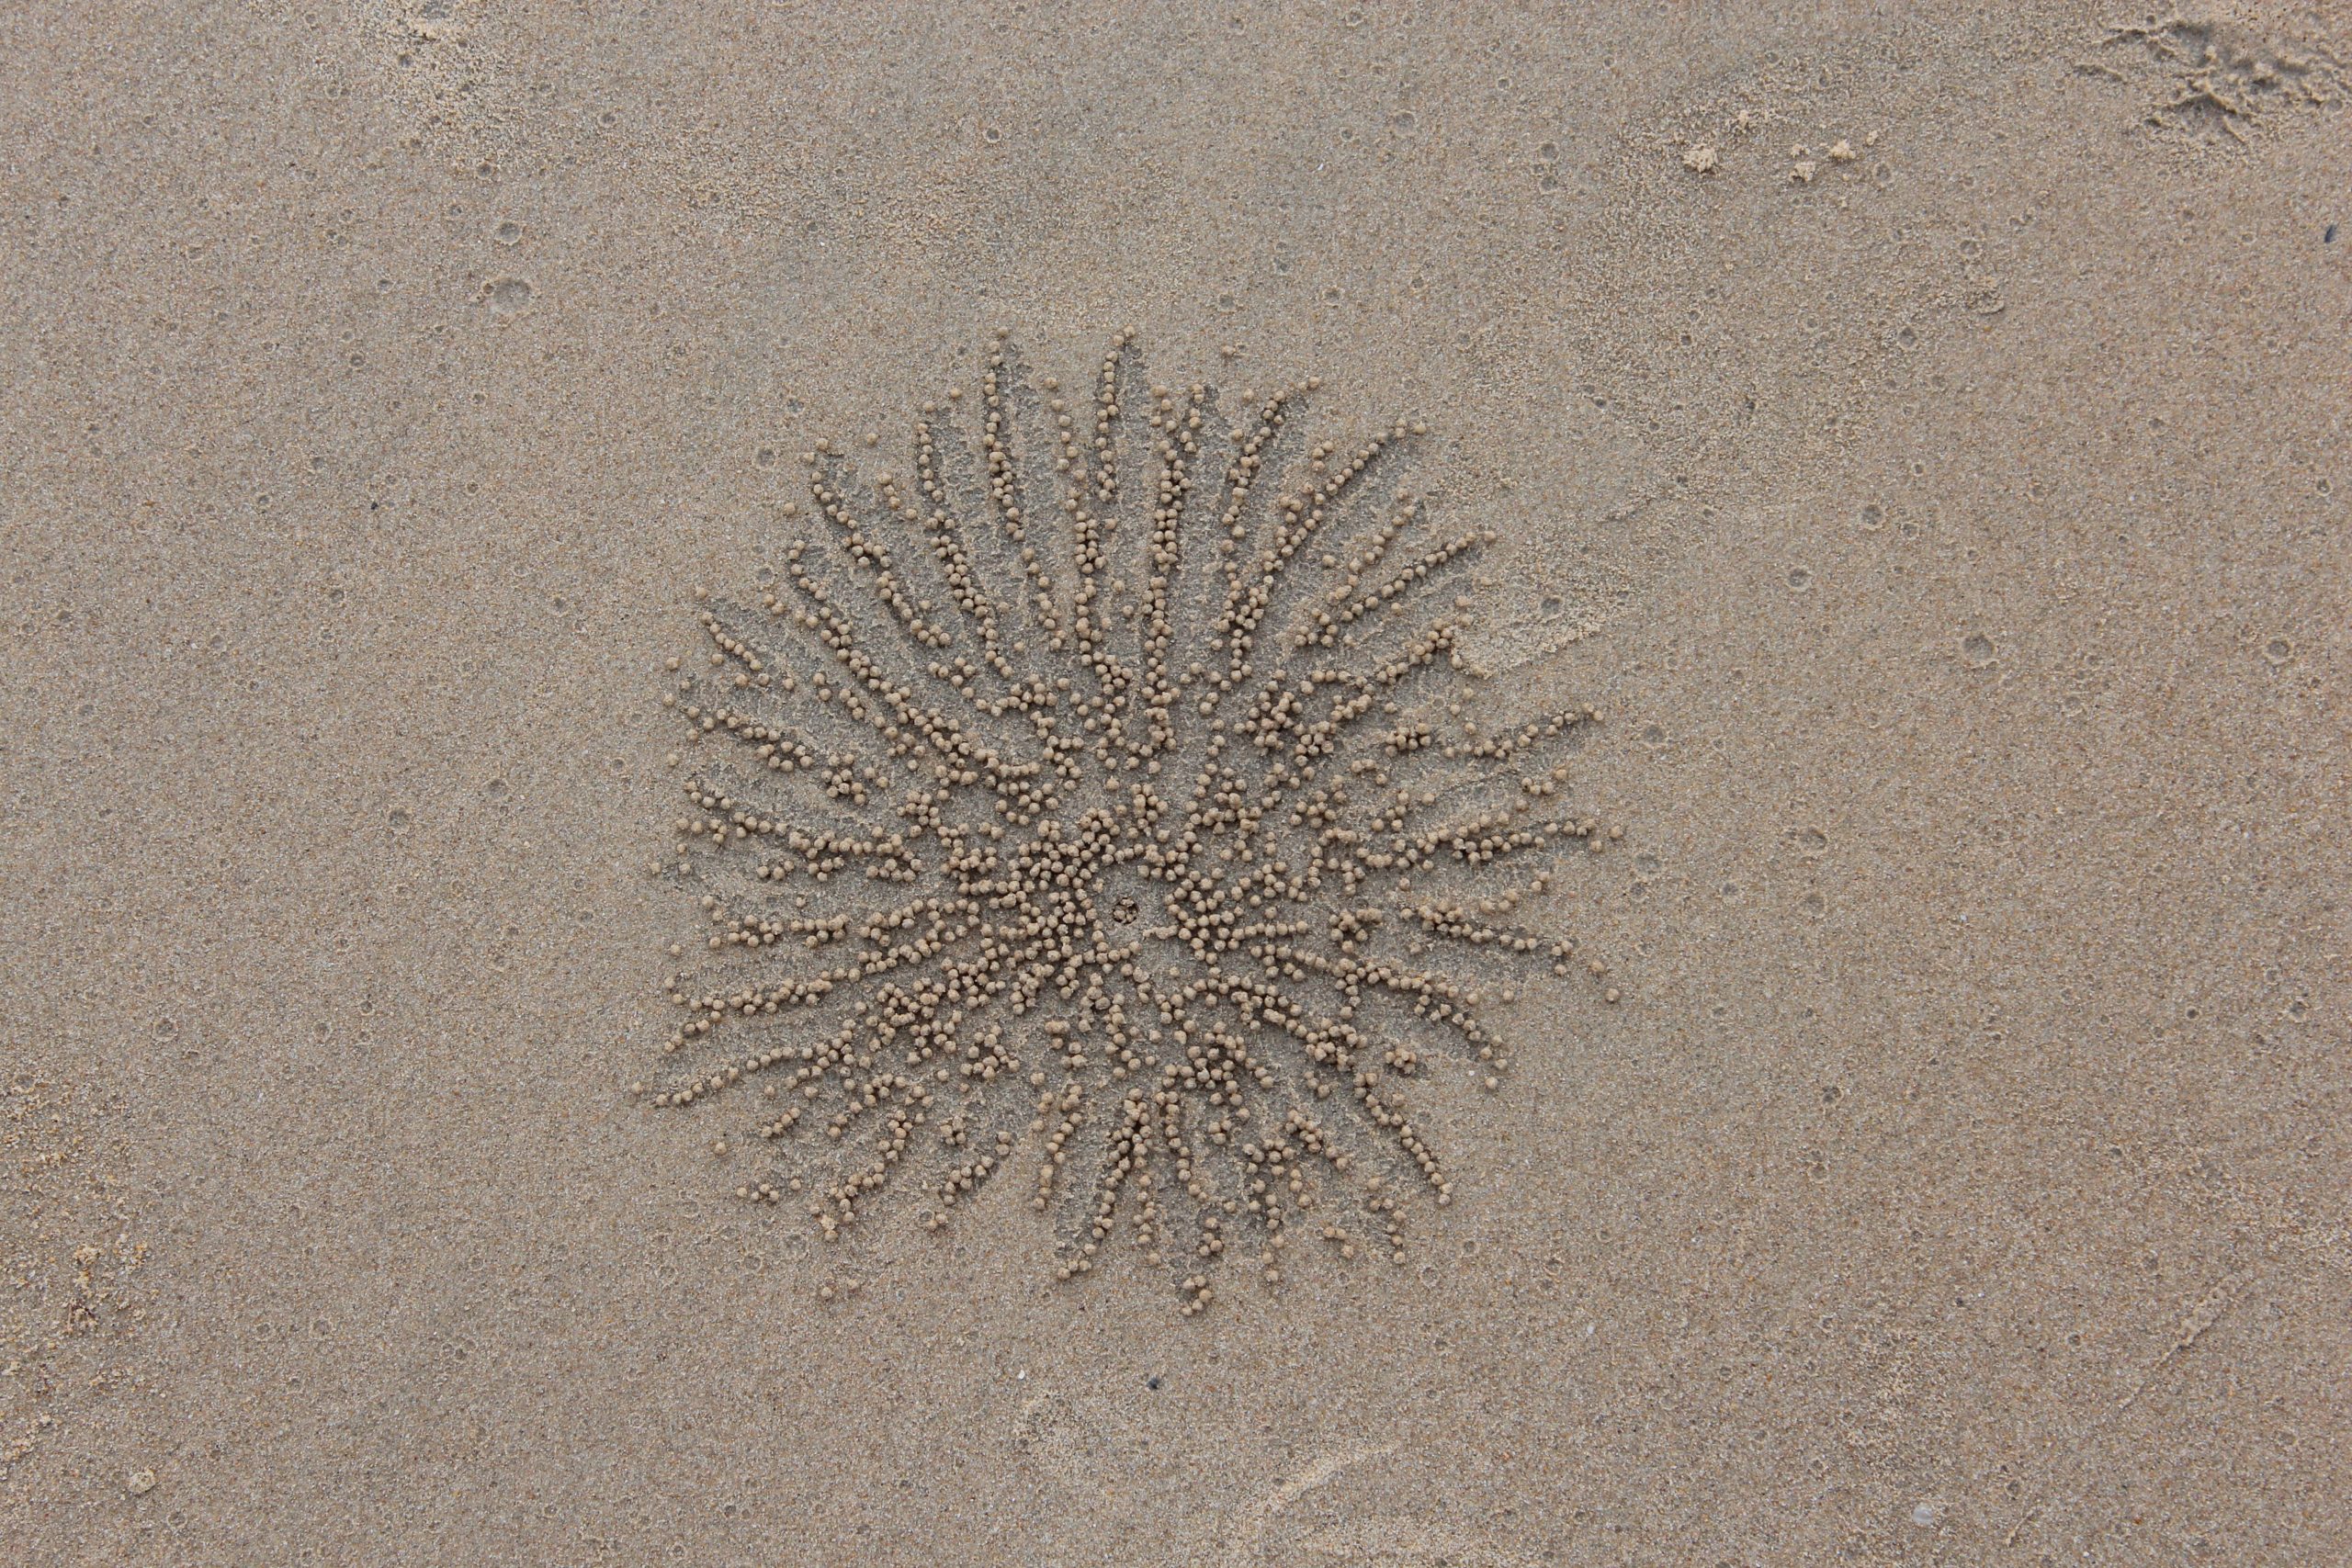
一粒粒沙球从洞口向外铺开
潮水退去后,蟹从简易洞穴出来,取食沉积物表层的有机碎屑。它们围绕洞口呈放射状取食,并留下没有沙球的通道,方便随时退回洞中。洞口与沙球留下了可量的线索:每个洞周围有多大的取食区、相邻洞有多远、同一块面积里有多少只蟹,都能从低潮时的地表记录下来。
两处海滩的剖面沿垂直海岸线的样带测量,从大潮最高水线一直量到低潮。每米记录垂直落差,样带彼此相隔200米。Prapas在2007年11月设九条样带,2008年4月复测其中五条;Bang Ben在2008年4月设三条。研究避开雨季,因为降雨时蟹会退进洞,雨水也会毁掉地表的取食沙球。
每条样带的蟹区内,研究者每约2米放一个0.25平方米样方,计数并拍照。随后从照片量洞径、每只蟹的取食面积和最近洞距。30个不同大小洞的预备测量显示,洞径和居住蟹的甲宽有很强线性关系,r²为0.934,因此后续以洞径代替直接量每一只蟹的甲宽。这种估算适用于这批样本,不能直接换算其他物种的体型。
Colin Munro在泰国拍的40秒近景,可以看到小蟹将沙送往口部。拍摄者标为同属D. myctiroides;它帮助观察取食动作,和Laem Son研究的物种不同。
沙粒进嘴后发生什么
沙球的形成始于螯足把湿沙或泥刮到口器外侧形成的沟槽。可食物质在口腔内筛分,第二颚足上的匙状刚毛是这一过程的重要结构。用于解释这类蟹筛食的“漂浮机制”,由Altevogt对ocypodid蟹提出假说,Miller后来在Uca中验证:水会主动进入口腔,较轻的有机物可浮起,较重的无机沙粒沉下并被排出。这一机制来自此前的摄食研究,说明排出沙球与筛取食物之间的关系。
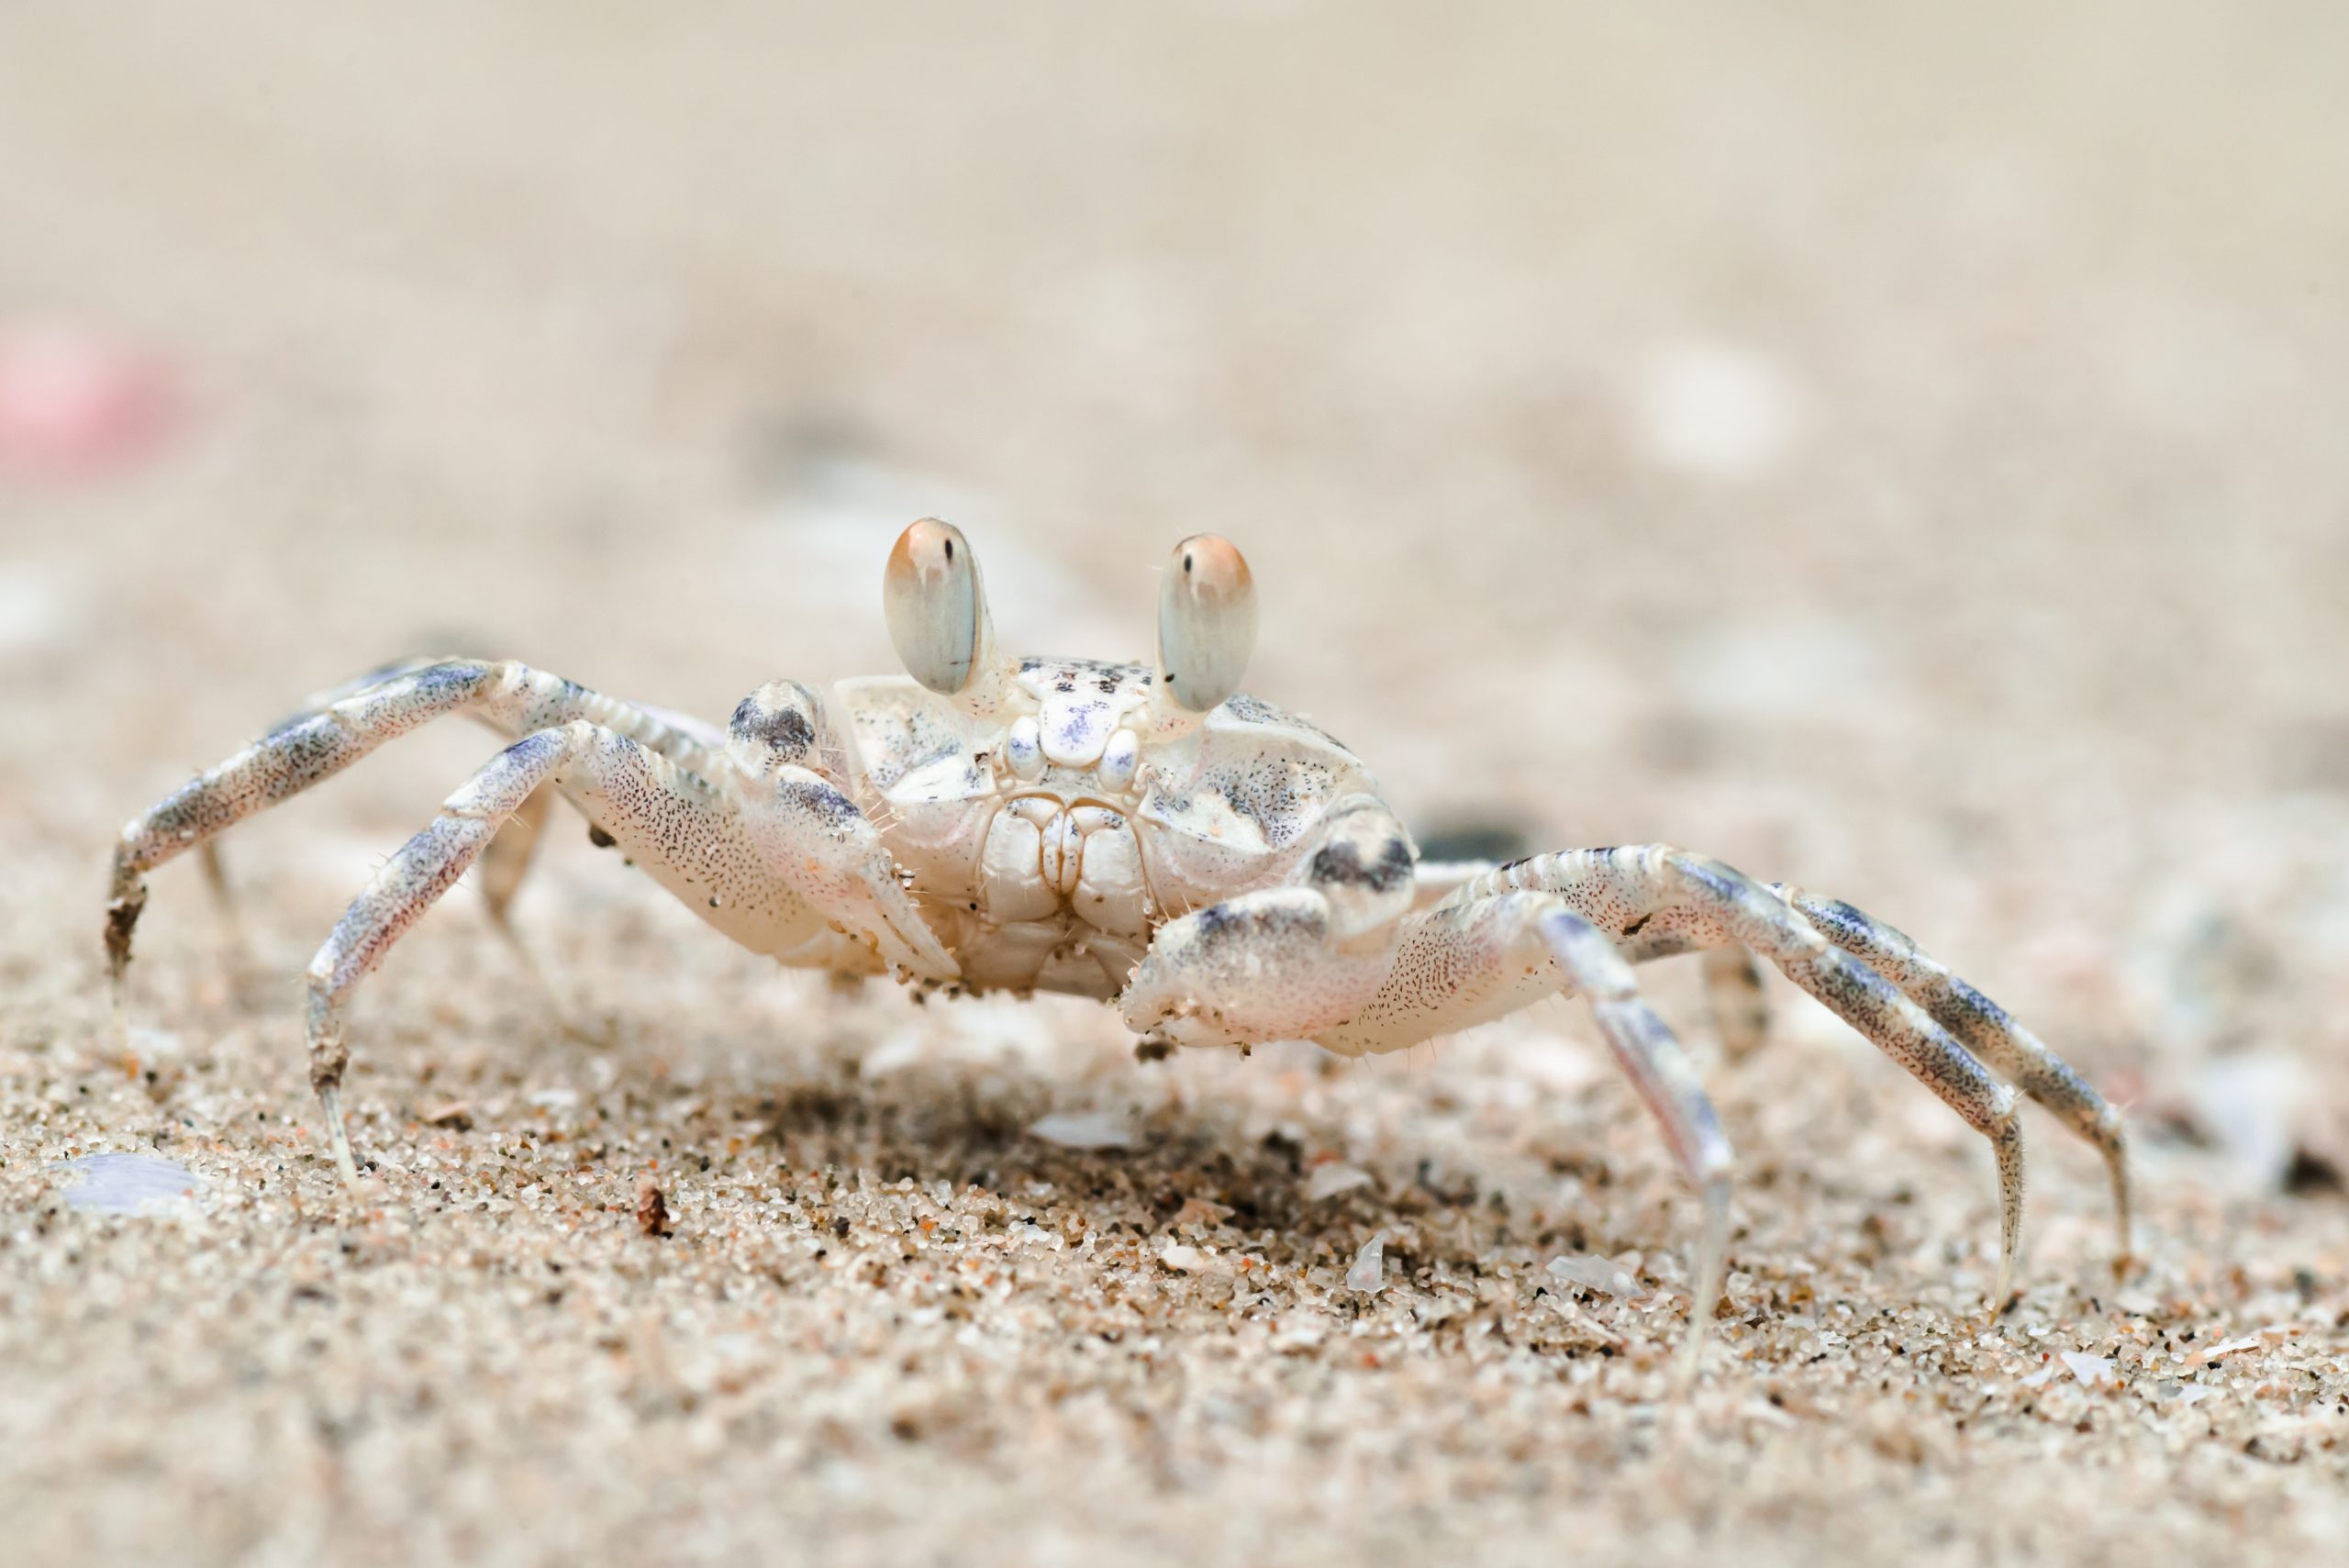
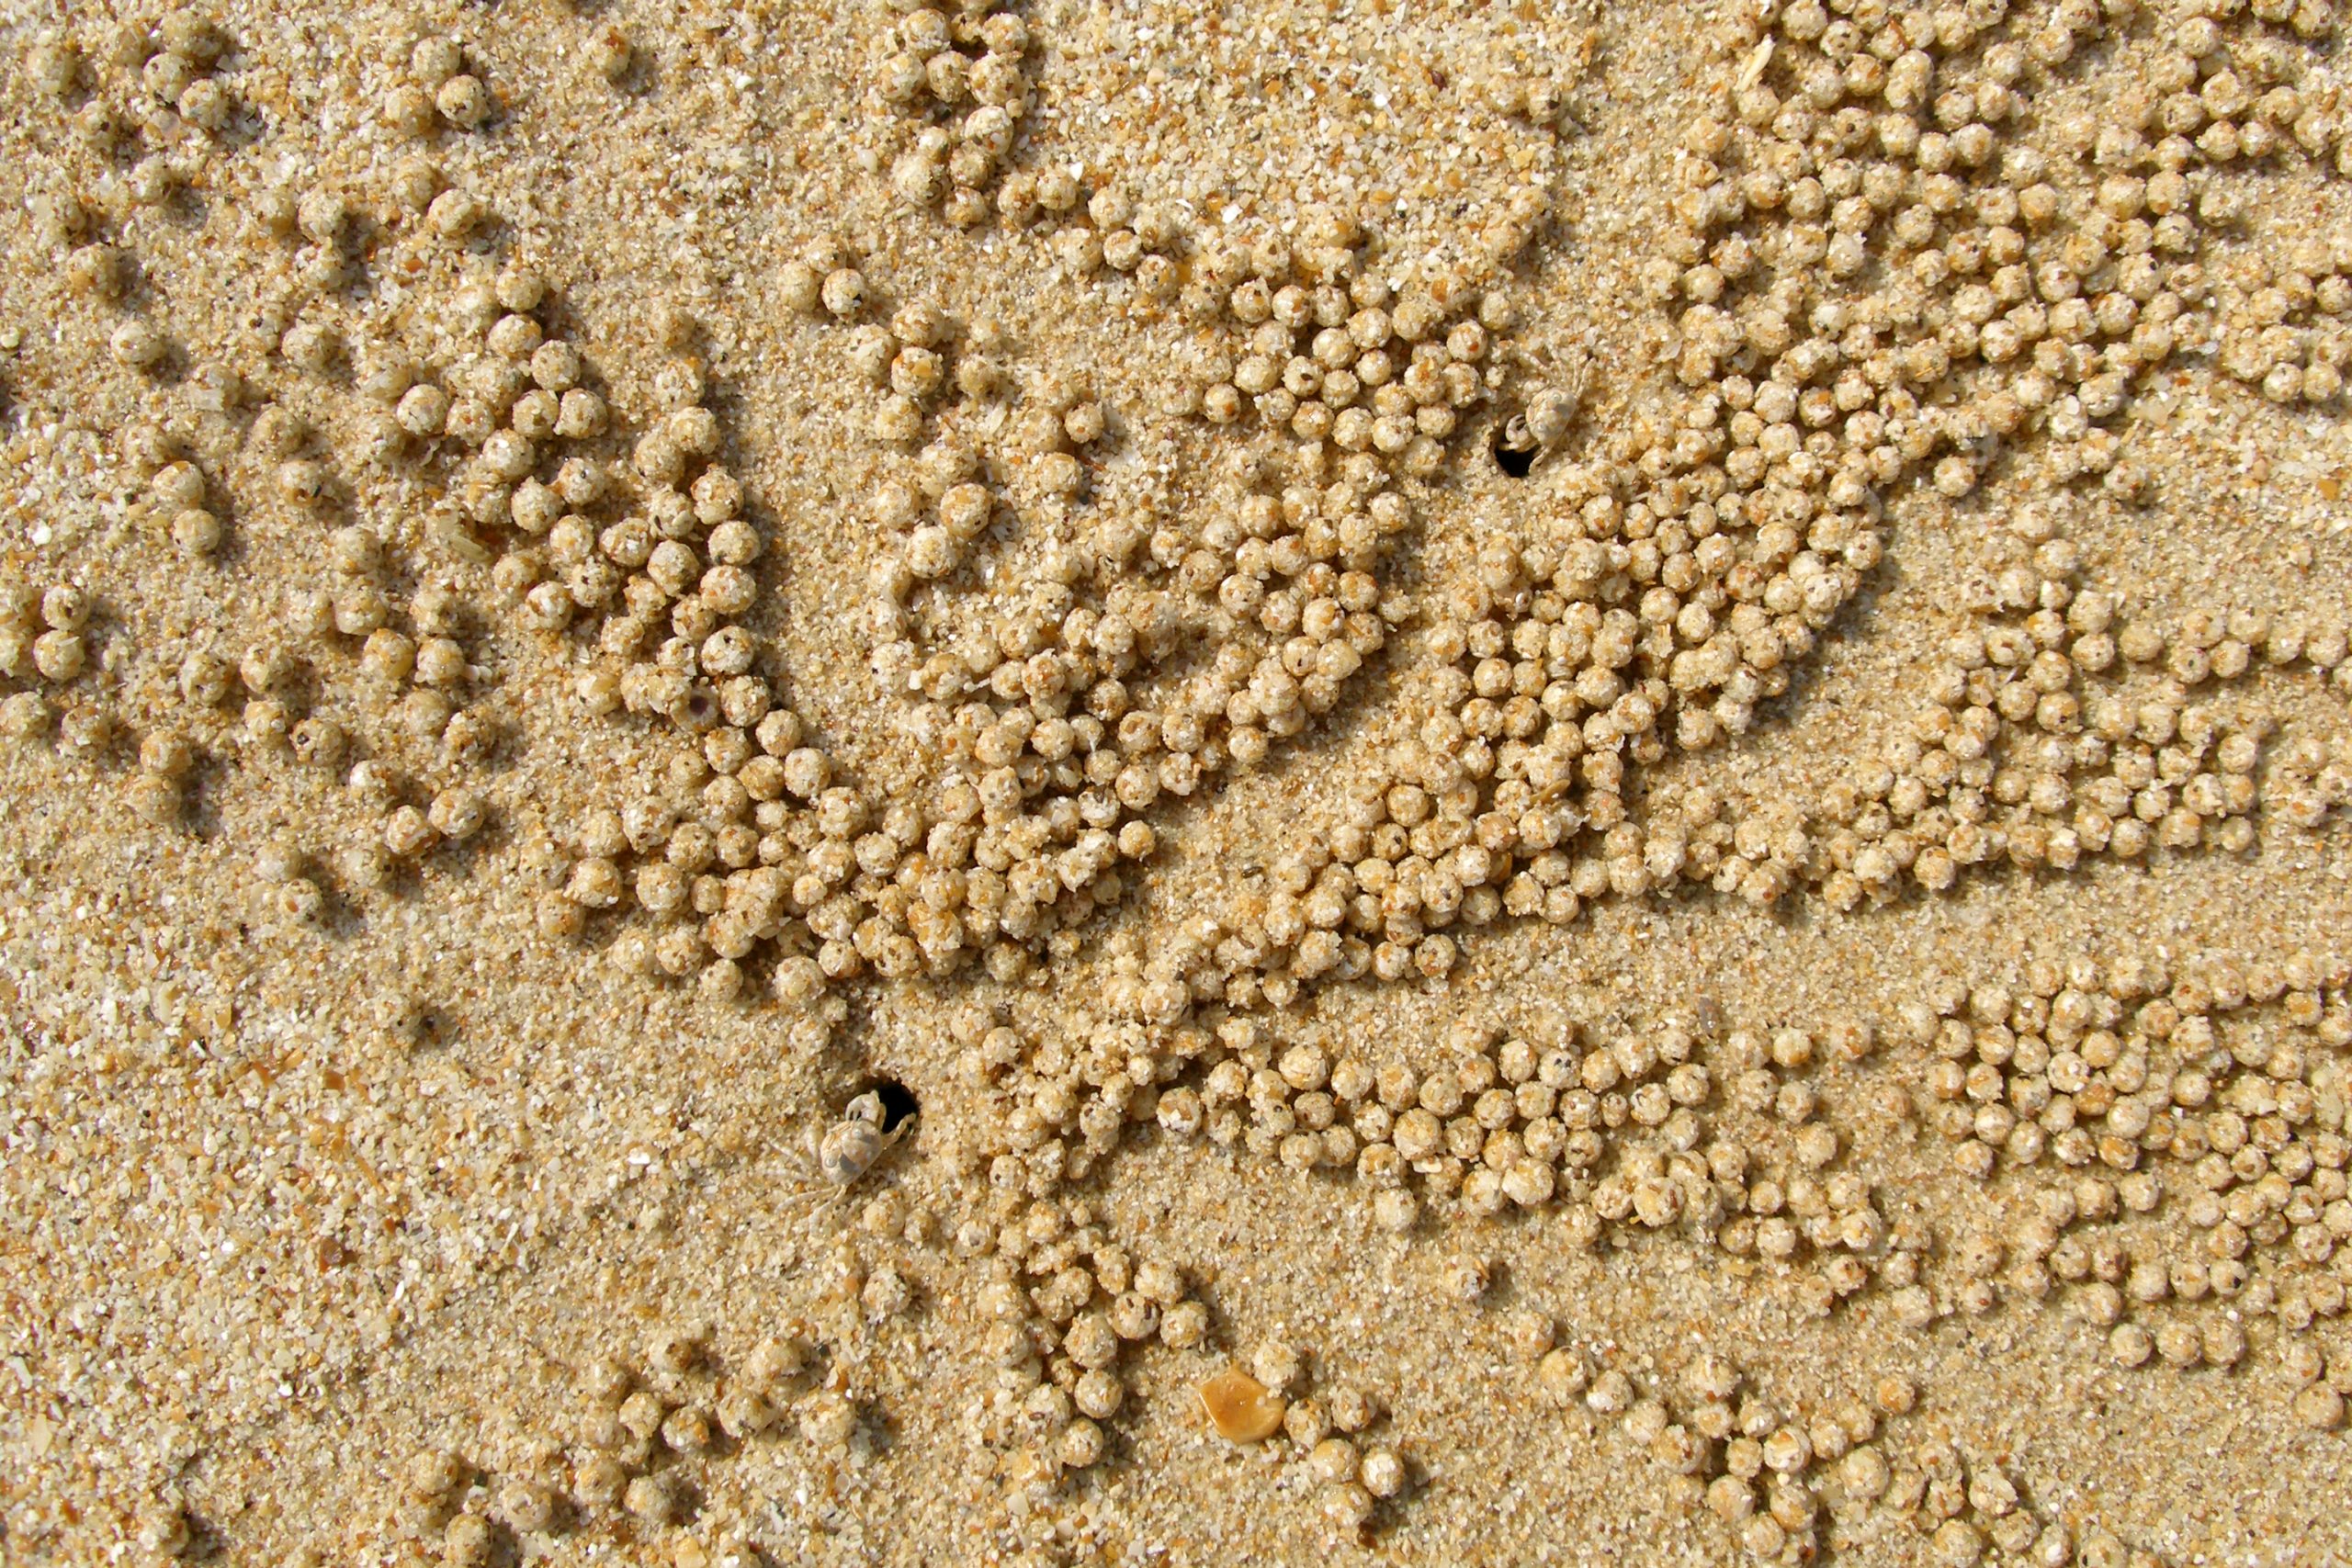
这些匙状刚毛位于第二颚足最大部分的内表面,属于merus和carpus形成的功能单元;其形状在Dotilla属内可作物种区分特征。Laem Son所记录的D. intermedia,其刚毛末端像弯曲的三齿叉。物种鉴定要观察这类细部。文中照片分别拍于三百峰国家公园、考拉与小长岛,展示泰国沙滩的小蟹和沙球;照片来源没有将其鉴定为D. intermedia,地点也与Laem Son的两处调查海滩不同。
Dotilla还有位于第四腹节末端的吸水刚毛。蟹可放低腹部,把刚毛压入沙中吸取孔隙水。采到的水先进入Dotilla腹部与胸甲之间的空间,再经腹节边缘的沟槽和通道到达鳃室。这套结构有助于Dotilla减少回洞补水的次数,在表面取食较久。Scopimera和Uca则可回洞补水。
15%说的是沙里的总水分
研究者在每条样带取五个位置:蟹区上方1米、上缘内1米、中段、下缘内1米和下缘外1米。5厘米直径的沉积物柱取到10厘米深,称重后在60°C烘至恒重;重量损失占原样重量的百分比,就是文中使用的总水分。
结果显示,水分从蟹区上方往低潮边界增加。D. intermedia 只在总水分达到约15%或更高的沉积物里被记录到。15%对应的是这两处海滩的柱样测量。沙面的颜色和沙球数量不能直接换算成柱样含水量。
表面有机质另取最表层3毫米沙样测量,对应Dotilla取食时处理的表层深度。样品经干燥与灼烧,以失重百分比估计有机质。它的平均值虽由高岸向低岸增加,却在蟹区内变化很大;主成分分析中,水分主导位置分离,粒径与分选度解释的变异很少。
低潮边缘留下4到5小时
蟹区下缘两次被潮水浸没之间,约有4到5小时露出水面。这是结合下缘高度与当地潮汐表得出的估算,并非逐只记录的连续取食时间。
下缘会随大潮和小潮循环移动,潮水限制了蟹在低岸活动的时间。
低处沙更湿,半永久直筒洞的形成和维持也更困难。其它Dotilla种的观察显示,半流动且不稳定的沙中可形成“igloo”式洞:蟹在沙下旋转,用沙球围出并盖住自身。作者在低岸看到这类洞的比例较高;地表的沙球看不到洞内结构,洞型要结合现场观察辨认。
同一蟹区里,体型也分带
研究把每处蟹区分成上、中、下三个等面积部分。三组海滩数据中,甲宽频率分布都有显著差异:上段偏向较大个体,下段偏向较小个体,中段更接近正态分布。平均甲宽也沿着上岸到下岸下降。Prapas 2007年上、中、下段分别为2.43、2.23、1.98毫米,2008年为2.83、2.21、2.06毫米;Bang Ben 2008年为3.25、2.89、2.34毫米。
样方平均甲宽越大,平均取食面积也越大;密度提高时,每只的平均取食面积下降。以100只每0.25平方米为例,拟合曲线给出的最大平均取食面积为17.3平方厘米;50只时为28平方厘米。作者把低岸较短的暴露时间视为大个体的潜在限制,小蟹则可能在4到5小时内获得足够能量。这是对分带机制的解释,而非直接测得每一只蟹的能量收支。
密度、取食区和沙滩形状
研究在Prapas 2007年记录的密度为每平方米12至424只,平均102只。最近邻分析在约10只每0.25平方米后稳定在R值1.3至1.5,表示接近随机、但略偏规则的间距。圆形取食区相互嵌合,可以解释这种间距;不同体型混在同一区域时,又可能掩盖更规则的分布。这是作者提出的解释。
Bang Ben较平,蟹区较宽,样本里的蟹也较大;Prapas在2007和2008的体型频率不同,作者认为,其中一部分差异可能来自个体随时间生长。粒径和分选度没有解释两岸蟹区内的位置变化,但它们仍限制哪类海滩可被该物种利用:在相邻的河口细沉积物区,记录的是Uca与D. myctiroides,与外海沙滩的物种组成不同;调查中粗沙海滩未见dotillid蟹。
上缘附近,沙中水分限制蟹的分布;低岸则有潮汐浸没和洞穴稳定性的约束。四项变量的比较中,总水分对位置差异的解释最强,表层有机质次之。低段与下缘外样品在PCA图中重叠,作者据此认为,下缘还受到未纳入分析的条件限制。坡度在作者的解释中也是其他物理因素的代理:潮汐、波浪与沙的相互作用会改变坡形,进而改变不同位置的水分和露出时间。
2005年,沙滩上再次有了小蟹
2004年12月26日海啸重创Laem Son沙滩。到2005年4月,岸上已再次见到D. intermedia,但数量低于2000年的记录,个体较小。海啸中的实际存活率仍未知:这些小蟹可能是新殖入者,也可能包含幸存者。
海啸后研究的遗传部分分别比较COI、16S和ITS1。Prapas的时间序列样本量为2005年20只、2006年15只、2007年15只、2008年19只;2008年Bang Ben另取20只。
COI和16S是线粒体标记,ITS1来自核基因组。作者提出的瓶颈假说,是海啸造成数量骤降,一些原本少见的单倍型随之丢失。COI和16S的单倍型多样性在时间序列中先下降,与这一预测相符;到2008年又有所升高,升高只在16S上达到显著。作者没有据此确认遗传多样性已经恢复,认为2008年的取样也可能恰好覆盖了更多样的一部分群体。
核标记ITS1的单倍型多样性在样本时间序列中持续上升,与两个线粒体标记的变化不同。这些样本的数量可能不足以捕捉Prapas群体的大部分变异,某个年份特有的低频单倍型可能在别的年份被漏采。要区分2008年的上升是趋势开始还是取样差异,需要更晚的样本。