先翻身,才谈得上稳定自旋
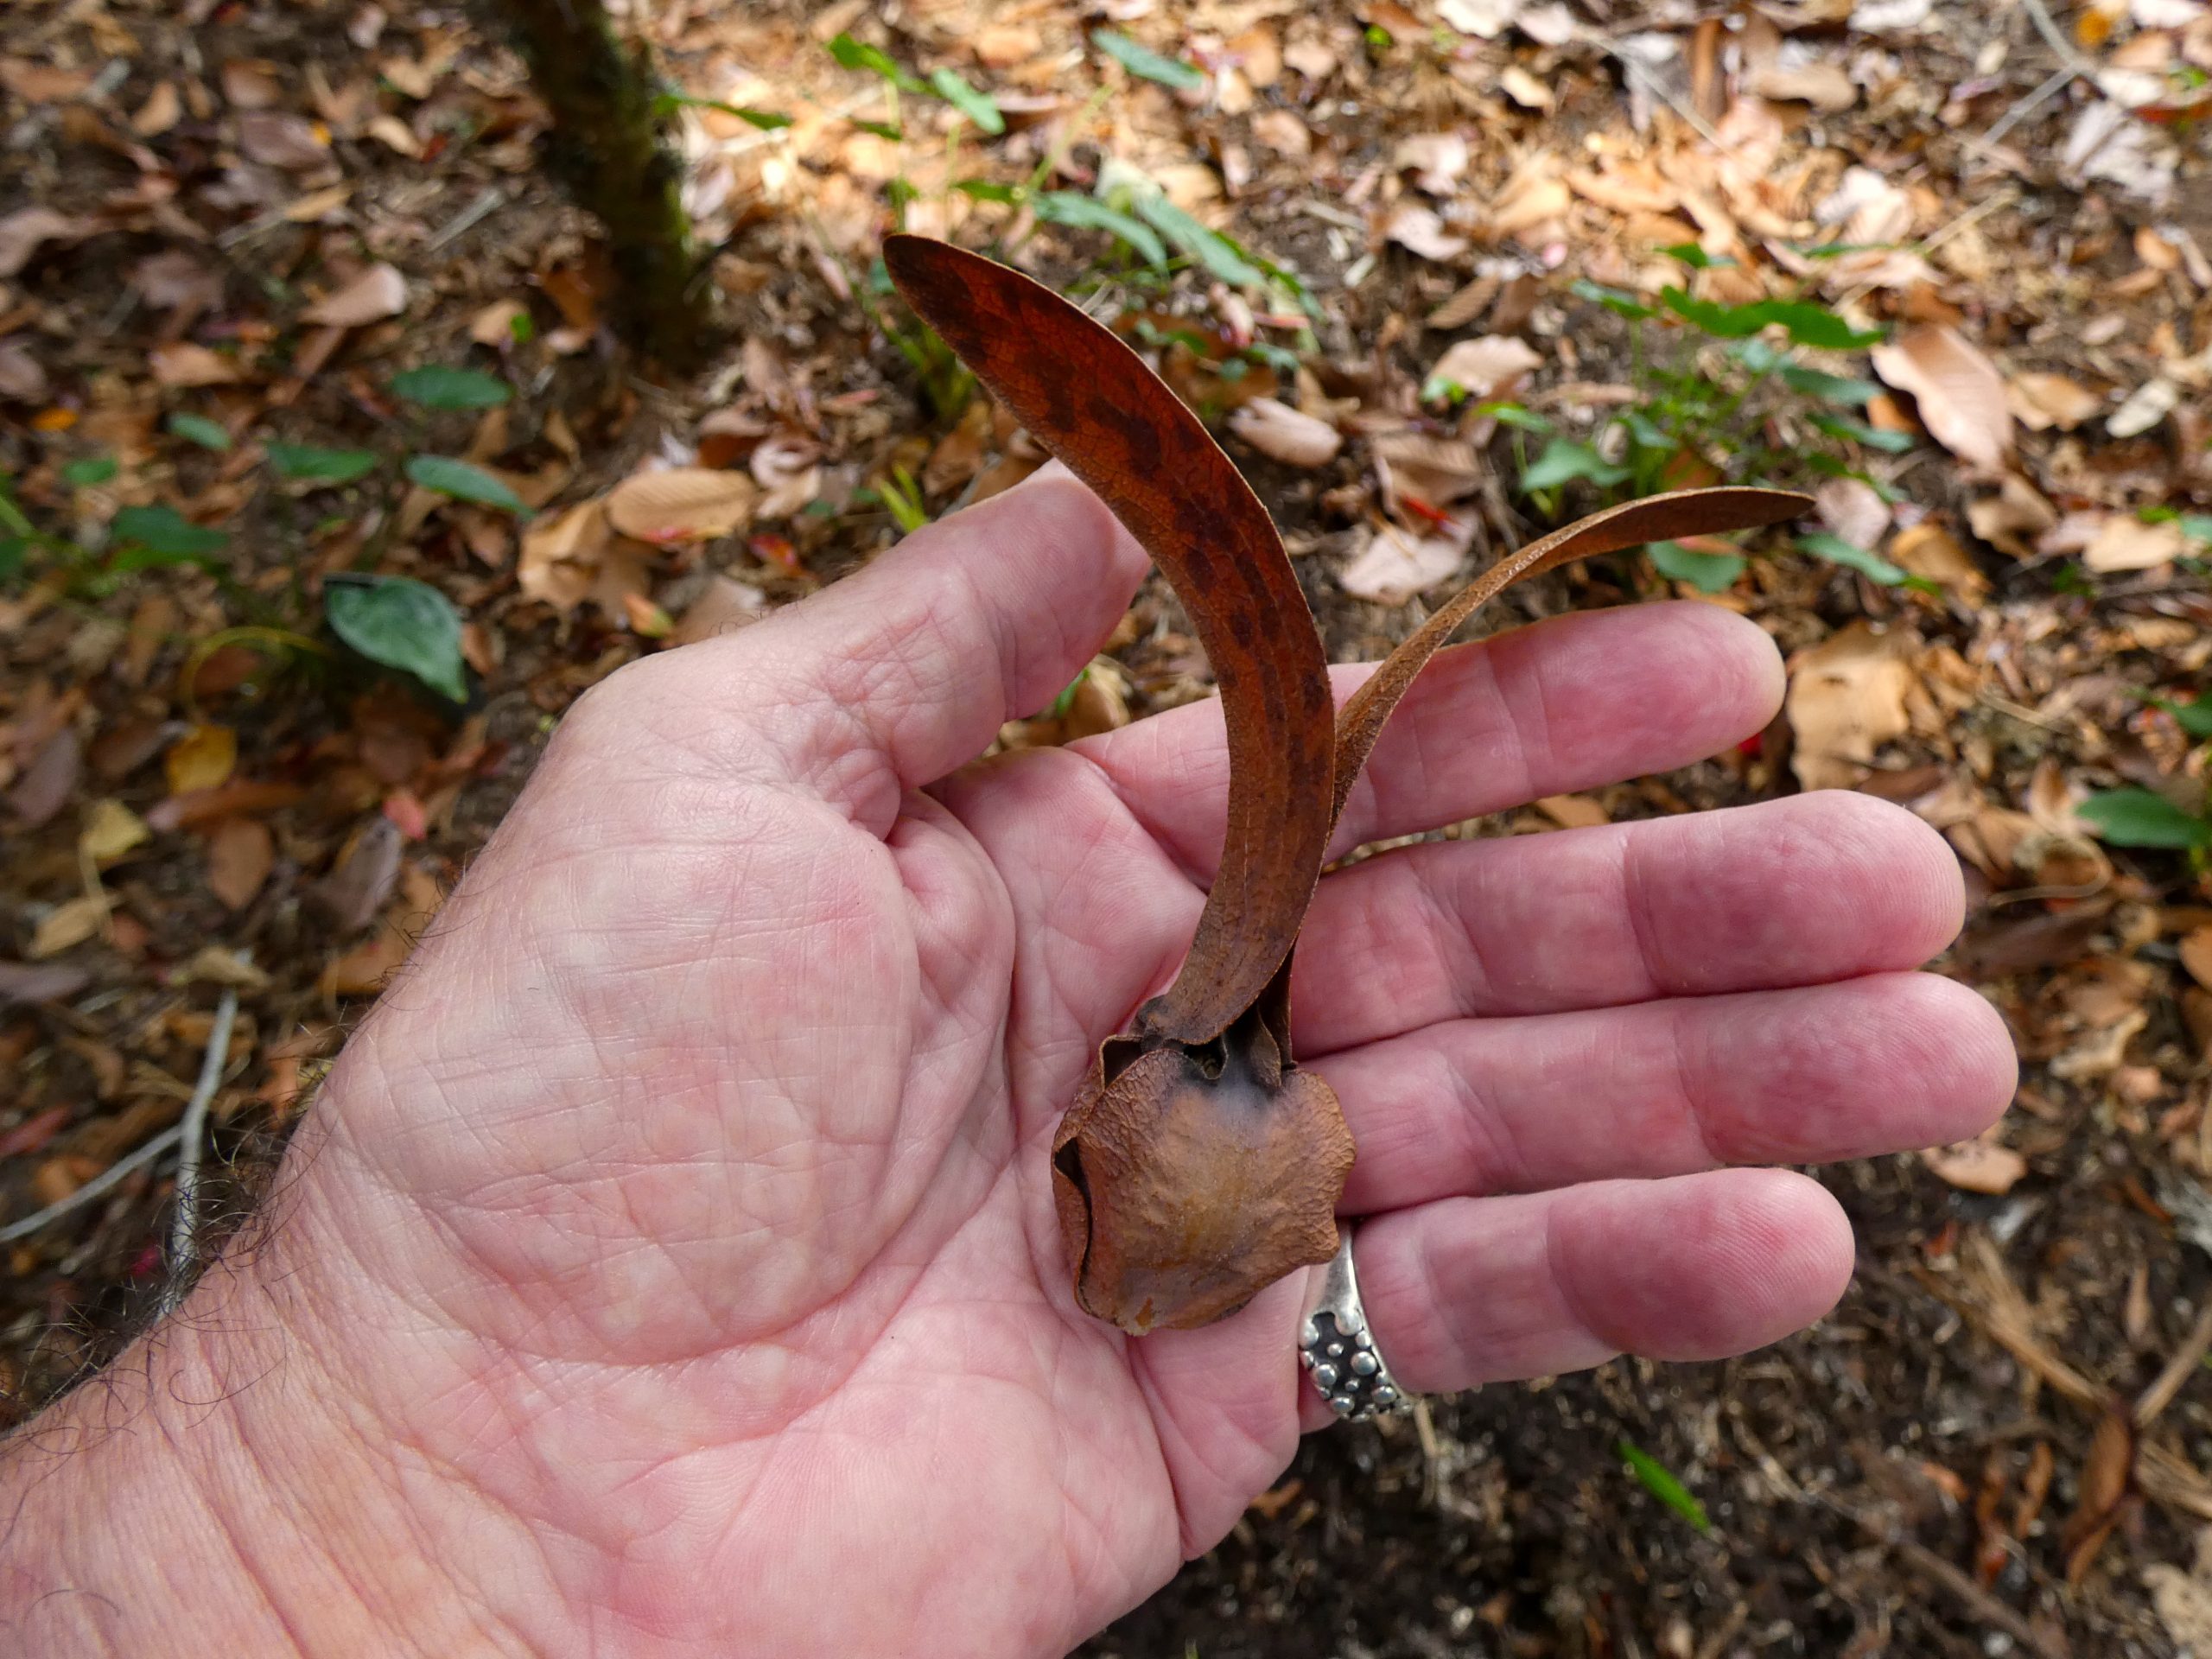
研究者把杨纳果实的竖直运动分成两个阶段。最初是 falling and flipping,也就是下落和翻转。果实刚释放时,翅和果体的相对位置还没有进入稳定状态,镜头里会看到姿态调整。随后进入 auto-rotation 阶段,果实主体在下,两片翅在上方转动。这一区分让刚离手时的姿态调整与稳定自旋各有清楚的名称。
2019 年的合成模型用叶片元理论处理自旋。它把一片翅沿长度拆成小段,逐段计算相对气流、局部迎角、升力、阻力和转动的力矩。终端下落状态有两个条件:竖直合力为零,合力矩也为零。下降速度和转速在同一个平衡里求解。2020 年的杨纳论文则用竖直位置资料和速度相关的受力模型拟合三枚果实的轨迹。
终端速度只描述向下位移随时间的变化。果实在这个阶段仍持续旋转,翅上也持续受力。翅的弯曲会改变各小段面对相对气流的角度,升力和力矩出现的位置也随之改变。两种形状即使扫过的面积相近,沿翅的受力分布仍可能不同。
2020 年论文把运动分为两个区间。翻身阶段的竖直受力写为重力与阻力;进入自旋后,旋转的翅还产生升力和力矩。这个分法不是给果实贴两个名称,而是让两段轨迹各用相应的受力关系处理。作者以无气流房间为前提,将水平方向速度近似为零,再从竖直位置随时间的记录检验模型。
在论文的写法中,翻身阶段的阻力项与竖直速度的平方相关。自旋阶段把升力和阻力合入另一项速度平方关系,终端速度由重力与这一项平衡时得到。这样写不是为了从一段视频算出所有空气动力细节,而是给三条位置时间曲线一个可拟合的竖直运动描述。论文随后将求得的曲线同 Tracker 取得的位置点比较。
三米高的录像怎样变成位置和时间
2020 年的杨纳实验在封闭、无气流的房间进行。研究者从离地 3.0 米处竖直释放果实,用每秒 240 帧的相机录像,再用 Tracker 从视频中取出位置和时间。三枚种子各自独立测试。这个装置有意把横风和乱流排除掉,让记录集中在竖直方向的变化。
240 帧每秒的记录把短暂的姿态变化拆成许多时间点。研究者从这些帧中得到竖直位置随时间的变化,并把位置记录放入速度相关的受力模型。论文把相关升力项写成与速度平方有关,再用模型去贴合每枚果实的轨迹。
装置还包括屏幕和 LED 光源,使录像的背景和照明保持稳定。研究者在 Tracker 中校准位移,视频的物理分辨率约为每像素 9.78 乘以 10 的负四次方米;示例分析图同时给出参照原点、0.315 米的校准尺、不同时间点的位置图和位移表。论文所说的“轨迹相符”,指的就是这类从录像逐点取得的竖直数据与模型曲线的比较。
相机离地约 1.5 米,与屏幕相距约 2.5 米。LED 面板由四角的聚光灯和十组 LED 阵列组成,作者报告照度为 400 到 800 勒克斯。这些布置服务于视频分析,并不是果实在自然环境中会遇到的光照或背景条件。
三个样本的质量分别为 2.70、2.85 和 3.20 克,拟合终端速度分别为 1.37、1.54 和 1.55 米每秒。进入自旋阶段后,三枚样本约在 0.5 至 0.7 秒达到终端速度。相机提供逐帧的位置和时间,终端速度来自对轨迹的模型拟合;三次下落记录不构成物种参数表。
这组数据的价值在于展示了相同室内装置中的三个独立样本。室外风、林冠高度和横向移动没有出现在这次竖直下落实验中。要讨论这些条件,需要另作现场测量。
在自旋区间,论文由受力关系得到一个简单的终端速度形式:速度趋近一个常数,其大小与质量和拟合出的空气动力参数有关。这个式子说明终端速度是模型中的平衡结果,不能从果实外观直接读出。表中的 1.37、1.54 和 1.55 米每秒因此应连同各自的质量、轨迹和室内条件一起看。
把帧率与这段时间放在一起,能看出录像的时间尺度。每秒240帧,相邻两帧约隔4.17毫秒;0.5至0.7秒约相当于120至168个帧间隔。这个换算只来自论文的帧率和时间范围,说明短暂的下落可以分成多少次位置记录,并未增加样本数量。同一枚果实的一百多个时间点仍属于同一次下落,不能把它们当成一百多枚果实的结果。
曲线翅的好处,不是越弯越慢
两篇 2019 年研究把问题放到可控制的模型上。研究者制作双翅的 3D 打印模型,在水槽中测试;流动条件与既有野生翅果实验的雷诺数和斯特劳哈尔数范围相近。折角 KL 是曲率 K 与翅长 L 的乘积,便于比较不同翅长的曲线。研究还分别调节基部翅角和翅载荷;该水槽试验在基部翅角 ψ 为 0 度时重复十次,在 ψ 为 35 度时重复三次。
模型的工作流程很直白:先在 CAD 中画出一组曲线翅,打印后放进水槽,再量终端下落速度和转动频率,对比不同形状下的结果。折角改变时,研究保持弯曲部分的翅长不变;空心球形果体允许加入已知质量的铅来改变载荷。模型入水后从水面下释放,侧拍相机记录果体最低点和翅尖的位置。研究人员也从水槽上方复测,结果与侧拍测量相符。
水槽中的图像不是只用来做示意图。研究者从侧拍画面抽取图像,追踪果体最低点和翅尖;旋转频率由翅尖位置的频谱峰值取得。为了检查侧拍处理,论文还加入俯视测量,两种观察的结果相符。这里得到的是合成模型在水中的速度和频率,用来检验叶片元计算能否解释受控条件下的变化。
一项折角研究使用高 1.2 米、直径 25 厘米的圆柱水槽,并另在水深 0.7 米、宽 0.5 米、长 10 米的大水槽中检查池壁影响是否落在实验误差内。侧拍以每秒 30 帧记录。这个额外的水槽比较说明了实验者怎样检查容器边界,而不是自然河流或森林中果实的下落情况。
结果没有支持“曲翅一定比直翅好”的说法。当 KL 改变时,模型的终端下落速度、转速和斯特劳哈尔数都呈非单调变化。研究者在不同载荷和折角下都看到一个中间的范围,那里竖直升力较大,终端下落速度较低。太直的翅与过度弯曲的翅,都没有自动得到最长的滞空时间。
论文给出的解释落在翅的局部几何上。较低下落速度对应的曲线,需要有一段接近水平的翅;若弯得太少,这样的区段不足,若弯得过多,翅尖的方向又不合适。两种模型的翅扫掠面积即使相近,升力沿翅的分布仍会不同。曲率随之改变受力位置和力矩。
叶片元计算还说明了力矩来自哪里。靠近转轴的翅段,在某些相对气流角度下可以产生带动旋转的水平力分量;靠近翅尖时,切向速度和阻力的影响更强,会形成相反的力矩。稳定自旋需要这两部分共同达到平衡。这个解释针对的是 2019 年的双翅模型,不能替代杨纳三枚样本的室内轨迹测量。
水槽实验可把形状和载荷逐项变化,再观察速度和转动怎样回应。研究还用固定翅面积、厚度和弦长的约束比较不同曲率,使变化集中在翅的弯曲。低速区、曲率和升力分布都来自这些合成模型的受控比较,不能改写成杨纳某枚果实的最佳曲率或固定转速。
在模型的量纲分析里,雷诺数把惯性与黏性力联系起来,斯特劳哈尔数把转动频率与下落速度联系起来。把这两个数调到与既有翅果数据相近,是为了让水槽模型落在可比较的流动范围,而不是复刻某枚果实的尺寸。叶片元计算接着使用每一小段的相对气流、局部迎角、升力和阻力,汇总出全翅的力和力矩。
具体到水槽试验,论文给出的雷诺数约在 2,400 到 14,000 之间,斯特劳哈尔数约为 0.35 到 0.82;另一篇合成模型研究将对照范围写为雷诺数约 2.4 乘以 10 的三次方到 1.2 乘以 10 的四次方、斯特劳哈尔数约 0.4。这些数字是实验流动条件的描述。它们不能用来替代杨纳三枚室内下落实验的终端速度。
研究者从多种干翅果的图像估计折角,发现不少形状接近模型中的低速区。不过这个比较只说明不同双翅果的干翅形状值得放在同一个力学框架里看。照片的拍摄角度会带来误差,论文用旋转 30 度的合成模型估计过约正负 10% 的偏差。这些照片也不足以为杨纳指定“最佳曲率”。2019 年的核心实验使用合成模型,没有逐一改变某枚杨纳果实的形状。
把室内结果放回它应在的位置
无风房间给出清楚的竖直轨迹。2020 年论文提出,把模型推广到有外部风的翅果还需要进一步实验验证。三米录像所能说明的是释放后的翻身、自旋与竖直速度变化;2019 年的合成模型则说明曲率为何值得单独测量。