先把“聚集发光”说准确
Pteroptyx 属中有会在河岸植被附近聚集展示的种类。论文在 Kantang 河记录的对象是 P. tener:成虫聚集在水椰林中,并利用零散的海桑属 Sonneratia caseolaris 树木作为展示位置。远看时,多只个体的闪光会形成明显节奏;这不表示所有 Pteroptyx 都同步,也不表示同一物种的每一只个体都以相同频率闪烁。
对河岸管理来说,展示树不是一棵可以单独保存的“萤火虫树”。水椰林的连续性、河岸边缘是否被硬化或清理、夜间是否被直射灯照亮,都可能改变成虫可使用的空间。论文记录的是该河段的植被组合,不能据此宣称某一种树在任何地点都能吸引或恢复萤火虫群。
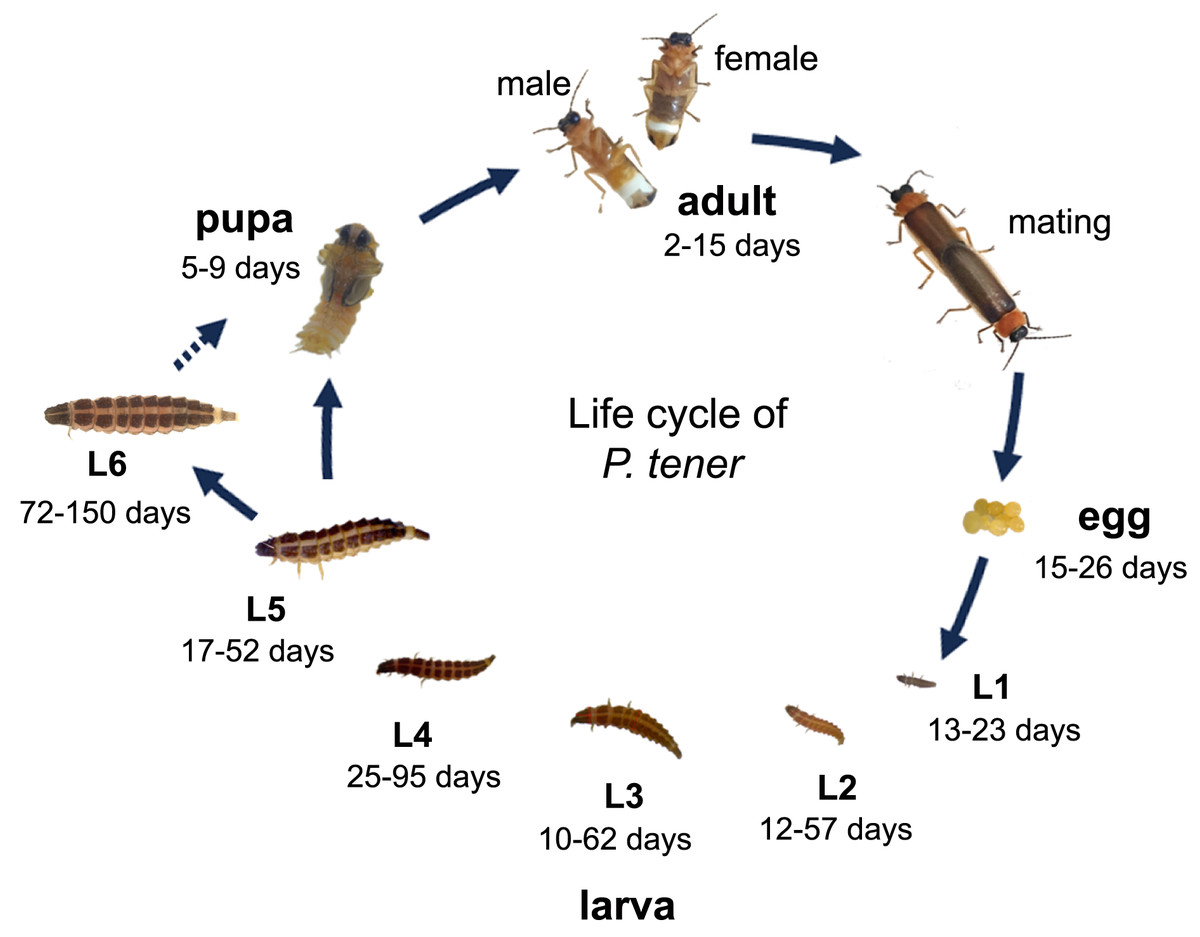
卵很小,幼虫阶段却占去大部分观察工作
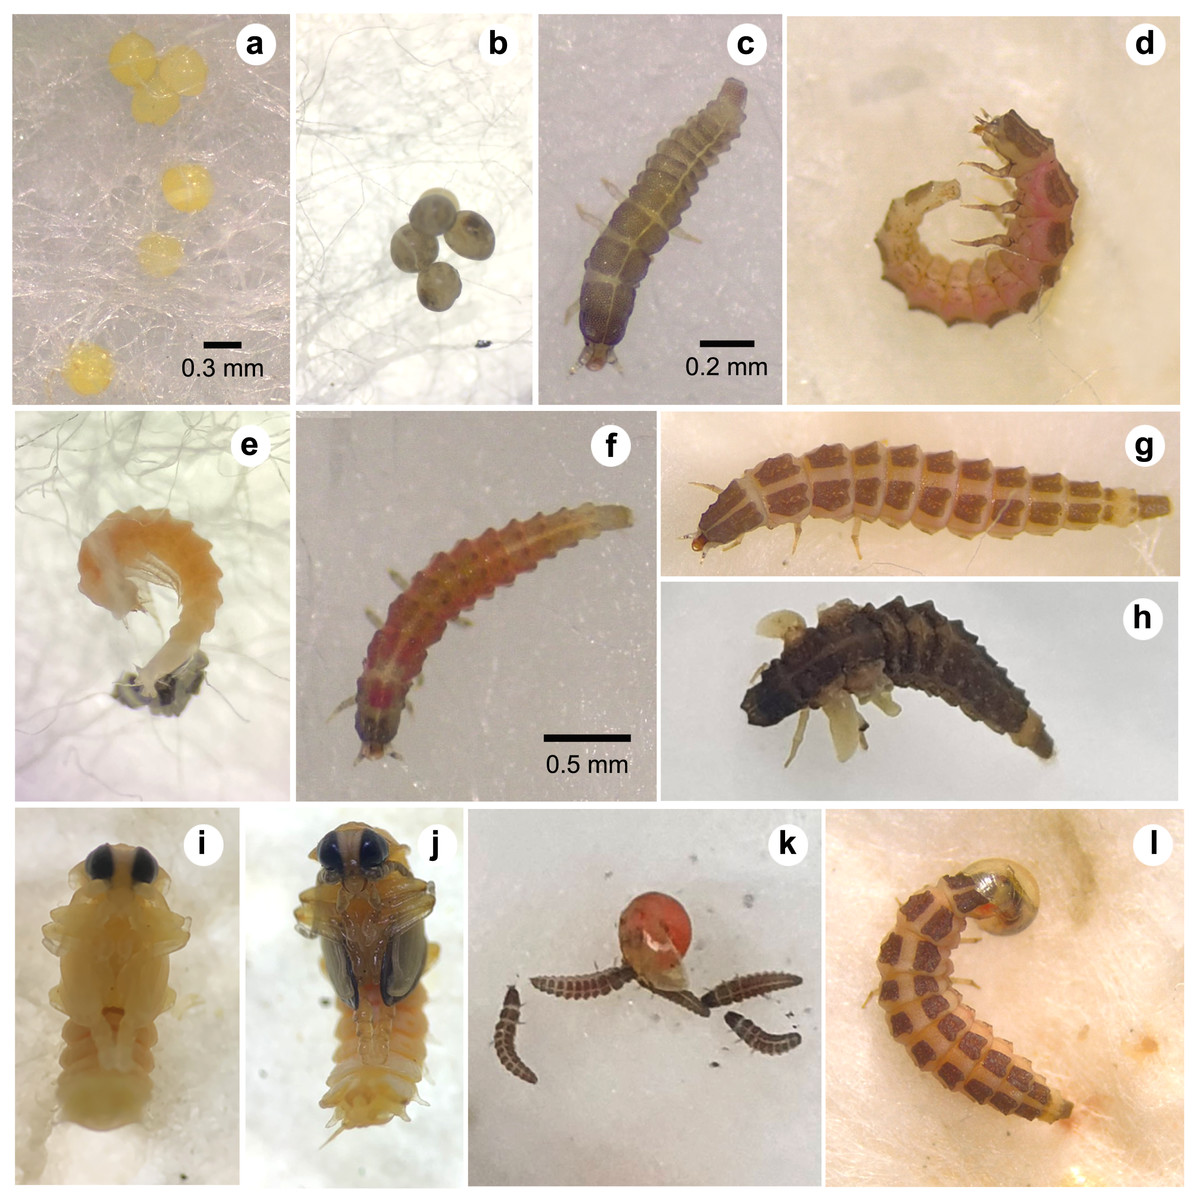
研究记录的卵直径约为 0.38 毫米。这个尺度解释了为什么野外调查不能只靠寻找卵团:它们远没有成虫闪光容易发现。孵化后的幼虫经过五龄或六龄,随后进入蛹期,再羽化为成虫。五龄和六龄的差异是论文的实际观察,不应被整理成每一只幼虫都必经同样次数的蜕皮。
实验室维持在约 25 至 27℃,以湿棉提供潮湿环境,并投喂幼年金苹果螺。湿棉不是对野外河岸底质的复制,而是让幼虫在容器中可持续观察的饲养条件;金苹果螺也只是论文采用并记录成功的食物。由此可以确认幼虫会捕食这种小型螺,而不能反推出它们在野外只吃这一种猎物。
一龄幼虫并非一直集体取食
论文对 L1(一龄)幼虫的 1,011 次取食事件作了计数:75% 是单独取食,22% 是小群取食,3% 是大群取食。小群围绕一只螺的画面很容易令人印象深刻,但它不是 L1 幼虫取食的常态。更准确的说法是,L1 幼虫可单独取食,也会在一部分事件中以小群或大群取食。
这项计数还提醒观察者不要把一次聚集当作完整行为规律。L1 幼虫的取食方式会受猎物、个体密度和实验条件影响;研究记录了行为比例,却没有许可把“群猎”写成整个生命周期的固定策略。若要讨论野外食物网,还需要野外底质、猎物和重复观察的独立证据。
七至八个月是实验室结果,瓶颈也在实验室里被看见
在上述条件下,从卵到成虫约需七至八个月。这是一个可用来理解饲养难度的范围,不是董里河的野外日历。温度、湿度、食物和容器内材料都被控制或改变过,野外水位、沉积物、微气候和捕食风险则不在这个实验结果里。
研究者尤其记录到 L4 至 L5 以及预蛹阶段的存活瓶颈。湿棉纤维还会影响羽化:蛹期或刚羽化的个体可能受到纤维缠绕或附着的干扰。这个细节使“保持湿润”不再是一句简单建议。对人工饲养而言,湿度和承托材料都要分别评估;对保护而言,也不该把实验室棉花条件错当成野外幼虫应有的底质。
同一条河,成虫与幼虫使用的空间不同
成虫展示被记录在水椰和零散海桑树上,幼虫则与河岸沉积物相关。两者都在河岸,却不是同一层空间:上方的枝叶提供成虫聚集时可停留的结构,靠近地面的湿润沉积物关系到幼体所处的微环境。这种差异让“保住展示树”成为必要却不充分的工作。
如果河岸只留下几株树,而底部沉积物被挖除、填平、污染或与水体隔绝,早期阶段的条件仍可能消失。反过来,只有泥质边缘却缺少可供成虫聚集的连贯植被,也无法复原论文所见的展示环境。保护对象应是一段仍能连接树冠、河岸边缘和水体的栖地,而不是一张夜景照片中的发光点。
把观赏行为放回真实风险里
东南亚聚集萤火虫的压力包括栖地改变、人工光和水污染。对 Kantang 这种河岸环境而言,夜间照明不只是让人较难看清闪光:灯光可能改变原有的暗夜背景;沿河开发或清理可能切断植被与沉积物;排水和污染则会影响河流及其河岸微环境。它们往往同时发生,不能靠单一措施概括。
实用的边界是避免把河岸树冠、潮湿边缘和水体拆开处理。观察时不折枝、不翻动沉积物、不向树冠或河面强光照射;管理时减少不必要的直射河面照明,保留连续河岸植被,并将水污染控制纳入同一段河流的日常治理。论文没有给出指定地点的游览方案,也没有建立某月一定能看到群闪的保证,因此本文不提供这类承诺。
这段白天视频只提供河岸背景
视频能帮助辨认研究所说的河岸环境:河道、水椰和边缘植被的关系。它没有记录成虫的闪光、幼虫取食或完整的发育过程。把这条限制写清楚,比把白天河景当作夜间展示的替身更接近原始证据。
从一篇生命周期研究能带走什么
P. tener 的成虫闪光依赖可以聚集展示的河岸植被,幼虫发育则把注意力拉回湿润沉积物、食物与微环境。PeerJ 论文提供了卵径、龄期变化、L1 幼虫的 1,011 次取食事件和人工饲养中的存活瓶颈,因此也划出了结论边界:七至八个月属于实验条件;L1 幼虫偶尔群体取食不等于全程群猎;两次采样不构成全年观赏预报。
这类严谨并不会削弱河岸闪光的吸引力。它让注意力从一夜可见的光,转向支持那束光出现的整段河岸生态。